3
.
Celulă și fiziologia celulară
mins
4 subcapitole
Structura celulei
Similar tuturor organismelor vii, corpul uman este alcătuit din celule. Acest concept, cunoscut drept teoria celulară, este un principiu de bază al biologiei. Se poate spune, astfel, că biologia corpului uman gravitează în jurul biologiei celulare.
Celulele reprezintă un criteriu important de clasificare a organismelor vii în două grupuri majore: procariote și eucariote. Celulele procariote sunt lipsite de nucleu, spre deosebire de cele eucariote, care au nucleu. În plus, celulele procariote nu au componente celulare interne numite organite, spre deosebire de celulele eucariote care au organite. Celulele procariote nu se divid prin procesul de mitoză, însă celulele eucariote da. Procariotele includ bacteriile, iar dintre eucariote fac parte plantele, animalele și oamenii.
Membrana plasmatică
Toate celulele, inclusiv cele umane, au două componente de bază: citoplasma și membrana plasmatică (numită și membrană celulară). Citoplasma este o substanță cu consistența unui gel, fundamentală pentru celulă. Ea conține cel mai mare component celular, nucleul. Membrana plasmatică este membrana exterioară, ce separă celula de mediul extern.
Membrana plasmatică delimitează celulele. Este alcătuită în principal din proteine și lipide, mai ales fosfolipide. Lipidele sunt așezate în două straturi (structură bistratificată). Proteinele globulare încorporate în această structură par să plutească printre lipide. Putem spune astfel despre membrană că are o structură de mozaic fluid. Proteinele din structura membranei îndeplinesc numeroase funcții.
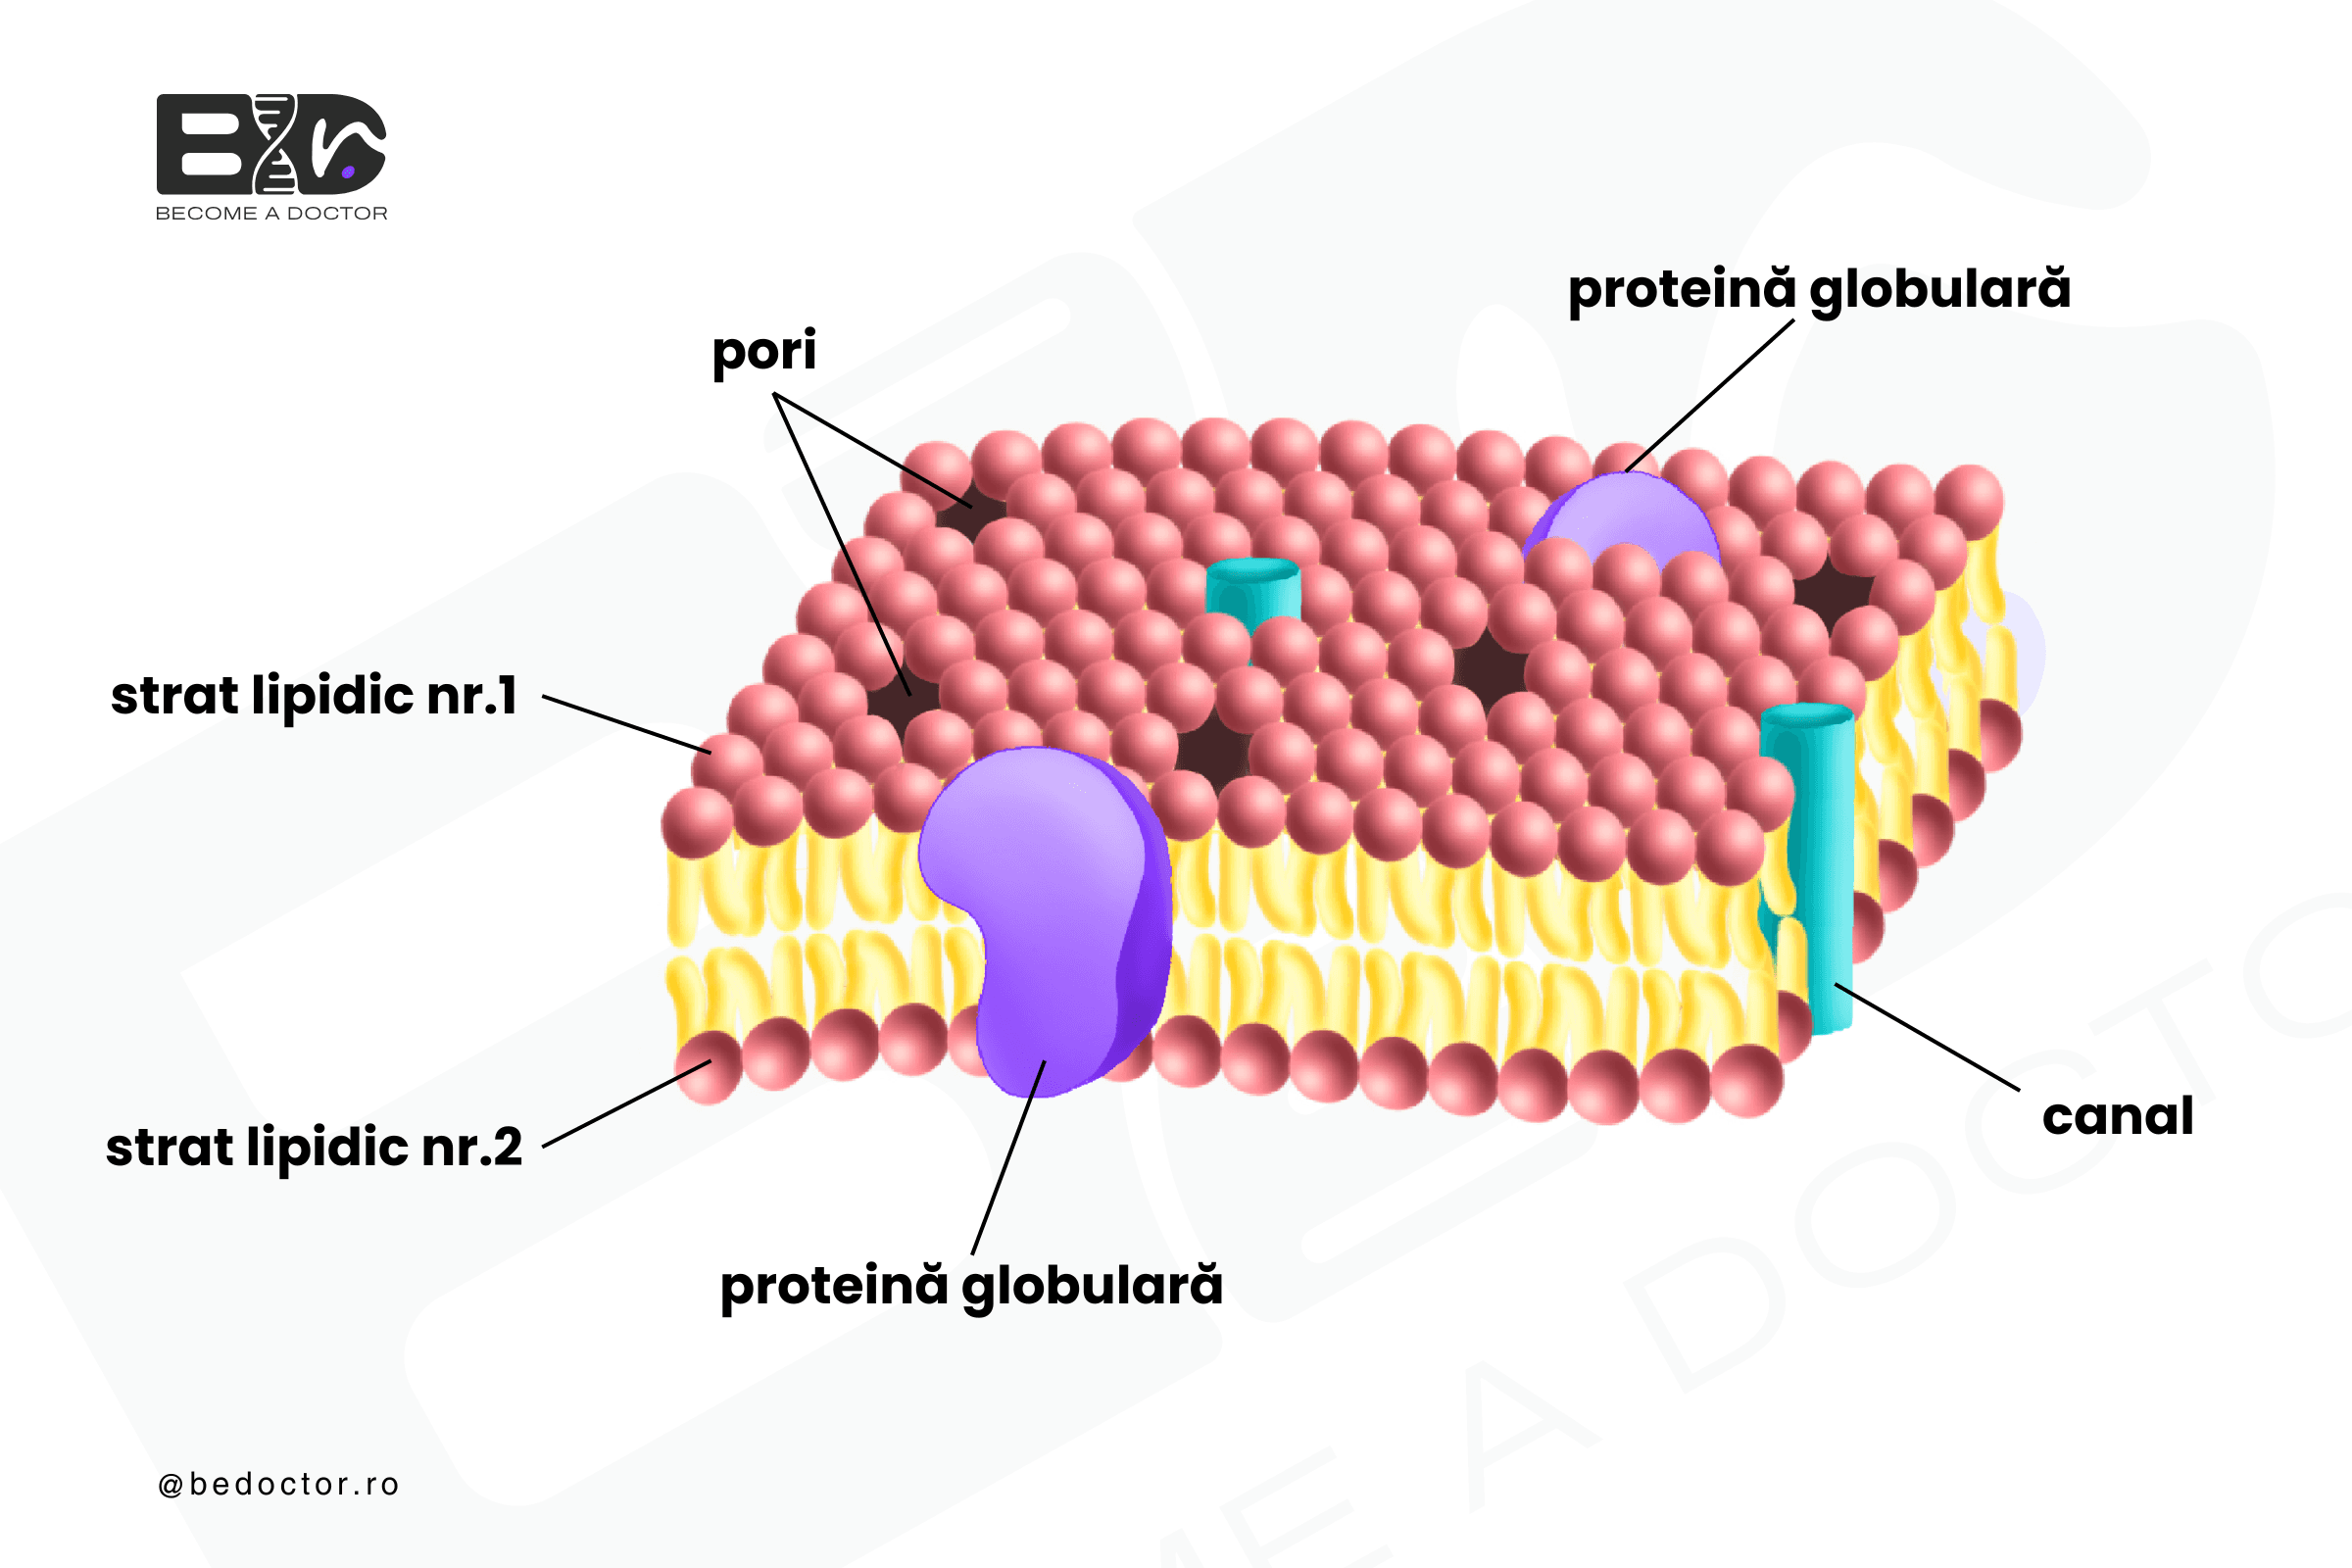
Figura nr. 3.1. Modelul mozaicului fluid al membranei plasmatice care delimitează celula. Membrana este alcătuită din două straturi fosfolipidice în care plutesc proteine globulare.
CUM SE CITEȘTE FIGURA: Nu orice proteină globulară străbate membrana: o proteină globulară poate traversa toată grosimea și proemina pe ambele fețe, sau poate fi cuprinsă numai într-un singur strat lipidic și proemina doar pe fața lui.
Fiecare fosfolipidă are un singur cap polar și exact două cozi de acizi grași.
Cozile celor două straturi se întâlnesc față în față la mijlocul grosimii membranei și formează miezul hidrofob.
Porii nu sunt structuri proteice, ci spații libere între capetele polare.
Porii sunt împrăștiați pe toată suprafața, nu grupați într-un singur loc.
Proteina transmembranară e îngustată la mijloc, în dreptul cozilor hidrofobe, și lățită la ambele capete, în dreptul capetelor polare.
Canalul e tot o proteină transmembranară și traversează întreaga grosime a membranei.
Capetele polare fac un pavaj compact pe amândouă fețele: nicio coadă de acid gras nu ajunge la suprafață.
Alcătuirea membranei
Fosfolipidele din membrana plasmatică au un capăt polarizat ce conține fosfor și unul nepolarizat alcătuit din lanțuri de acizi grași. Capătul polarizat este atras de apă și deci este hidrofil („îi place apa”), în timp ce capătul nepolarizat interacționează cu alte substanțe, de asemenea nepolarizate, respingând moleculele de apă. Acest al doilea capăt este, astfel, hidrofob („se teme de apă”).
Datorită acestor proprietăți ale fosfolipidelor, membrana plasmatică are o structură de „sandwich”, în care capetele polarizate intră în contact cu apa din exteriorul și interiorul celulei, iar capetele nepolarizate se află față în față în porțiunea internă a membranei. Această proprietate a fosfolipidelor îi permite membranei plasmatice să-și mărească suprafața atunci când veziculele aparatului Golgi fuzionează cu ea.
Unele dintre moleculele stratului lipidic situat spre exterior au atașate molecule de glucide; acestea se numesc glicolipide. Membrana plasmatică mai conține și cantități mari dintr-un lipid numit colesterol. Colesterolul stabilizează lipidele din membrană, reducându-i acesteia fluiditatea.
Proteinele din membrana plasmatică sunt atât transmembranare, cât și periferice:
Proteinele transmembranare ocupă întreaga grosime a membranei, proemină pe ambele fețe ale acesteia și servesc drept canale pentru transportul membranar. Ele pot servi, de asemenea, și ca transportori ai moleculelor organice. Moleculele de glucide se asociază de obicei cu proteinele situate înspre mediul extern al celulei; acestea se numesc glicoproteine. Glicolipidele și glicoproteinele din exteriorul celulelor le permit acestora să se recunoască una pe cealaltă, servind ca și receptori pentru moleculele semnalizatoare, precum hormonii.
Proteinele periferice se atașează pe suprafața membranei. Multe dintre acestea acționează ca și enzime, iar altele au rol în remodelarea celulară în timpul diviziunii și contracțiilor celulare.
CAPCANĂ DE GRILĂ: Hormonii steroidieni nu se leagă de receptori de membrană: se dizolvă în fosfolipide și trec direct prin bistratul lipidic; receptorii de suprafață sunt folosiți de majoritatea hormonilor proteici, peptidici și aminici.
Mișcările moleculare prin membrană
Membrana plasmatică este semipermeabilă, deoarece moleculele mici (O₂, CO₂ și apa) și lipidele pot aluneca printre moleculele fosfolipidice, în timp ce moleculele mari nu pot trece cu ușurință înspre sau dinspre celulă. Pentru ca citoplasma să comunice cu mediul extern, substanțele trebuie să treacă prin membrana plasmatică. Sunt câteva modalități prin care aceste treceri se pot realiza.
Una din aceste modalități se numește difuziune. Difuziunea reprezintă mișcarea moleculelor dintr-o zonă cu o concentrație mare într-una cu concentrație mică, diferență numită gradient de concentrație. Această mișcare apare deoarece moleculele se află într-o continuă coliziune una cu cealaltă și tind să se deplaseze din zonele unde sunt foarte concentrate înspre cele în care concentrația lor e mai scăzută. În plămân, moleculele de oxigen trec prin difuziune din alveolele pulmonare în globulele roșii.
Un tip de difuziune este osmoza. Osmoza reprezintă difuziunea moleculelor de apă printr-o membrană semipermeabilă dintr-o regiune cu o concentrație mică a substanței dizolvate (solvit) într-una cu o concentrație mare. Membrana semipermeabilă permite doar trecerea anumitor molecule, cum ar fi moleculele de apă. Un solvit este o substanță chimică dizolvată în lichid (solventul). Un exemplu de solvit este clorura de sodiu.
Mecanismul | Caracteristici | Exemplu |
|---|---|---|
Difuziune | Trecerea moleculelor din zone cu concentrație mare în zone cu concentrație mică | Difuziunea oxigenului din plămâni în capilare |
Osmoză | Difuziunea apei | Reabsorbția apei la nivelul tubilor renali |
Difuziune facilitată | Difuziune cu ajutorul unei proteine transportoare | Difuziunea glucozei în hematii |
Transport activ | Trecerea moleculelor din zone cu concentrație mică în zone cu concentrație mare cu ajutorul unei proteine transportoare și a energiei furnizate de ATP | Reabsorbția sărurilor la nivelul tubilor renali |
Endocitoză | Membrana înglobează substanțe și le atrage în celulă prin vezicule delimitate de membrană | Ingestia bacteriilor de către leucocite |
Exocitoză | O veziculă citoplasmatică delimitată de membrană fuzionează cu membrana celulară și își eliberează conținutul în afara celulei | Eliberarea neurotransmițătorilor de către celulele nervoase |
Tabelul nr. 3.1. Cele șase mecanisme ale mișcării moleculare prin membrana celulară.
Pentru a înțelege osmoza, imaginați-vă ce se întâmplă când celulele umane sunt introduse într-o soluție cu concentrație de 5% sare. Concentrația normală a sării în citoplasmă este de aproximativ 1%, deci concentrația mai mare a solvitului se află în afara celulei. Așadar, apa se deplasează din citoplasmă, prin membrana celulară, în direcția concentrației mai mari de sare. Rezultatul este micșorarea („zbârcirea”) celulei. Deoarece soluția are concentrația de solvit mai mare, ea se numește soluție hipertonă.
Imaginați-vă ce se întâmplă când celulele umane sunt introduse într-o soluție cu o concentrație de doar 0,3% sare. Concentrația sării în citoplasmă este tot de aproximativ 1%, astfel încât concentrația mai mare a solvitului se află în interiorul celulei. Așadar, apa se deplasează înspre citoplasmă prin membrana celulară, în direcția concentrației mai mari de sare. Osmoza face ca celulele să se umfle sau să se lizeze (să explodeze). Întrucât soluția de la exterior are concentrația mai scăzută de sare, ea se numește soluție hipotonă.
Dacă concentrațiile de sare ar fi la fel în interiorul și în exteriorul celulei (aproximativ 1%), soluția ar fi izotonă. Osmoza nu se produce când celulele sunt plasate în soluție izotonă, deoarece concentrația solvitului este aceeași de ambele părți ale membranei.
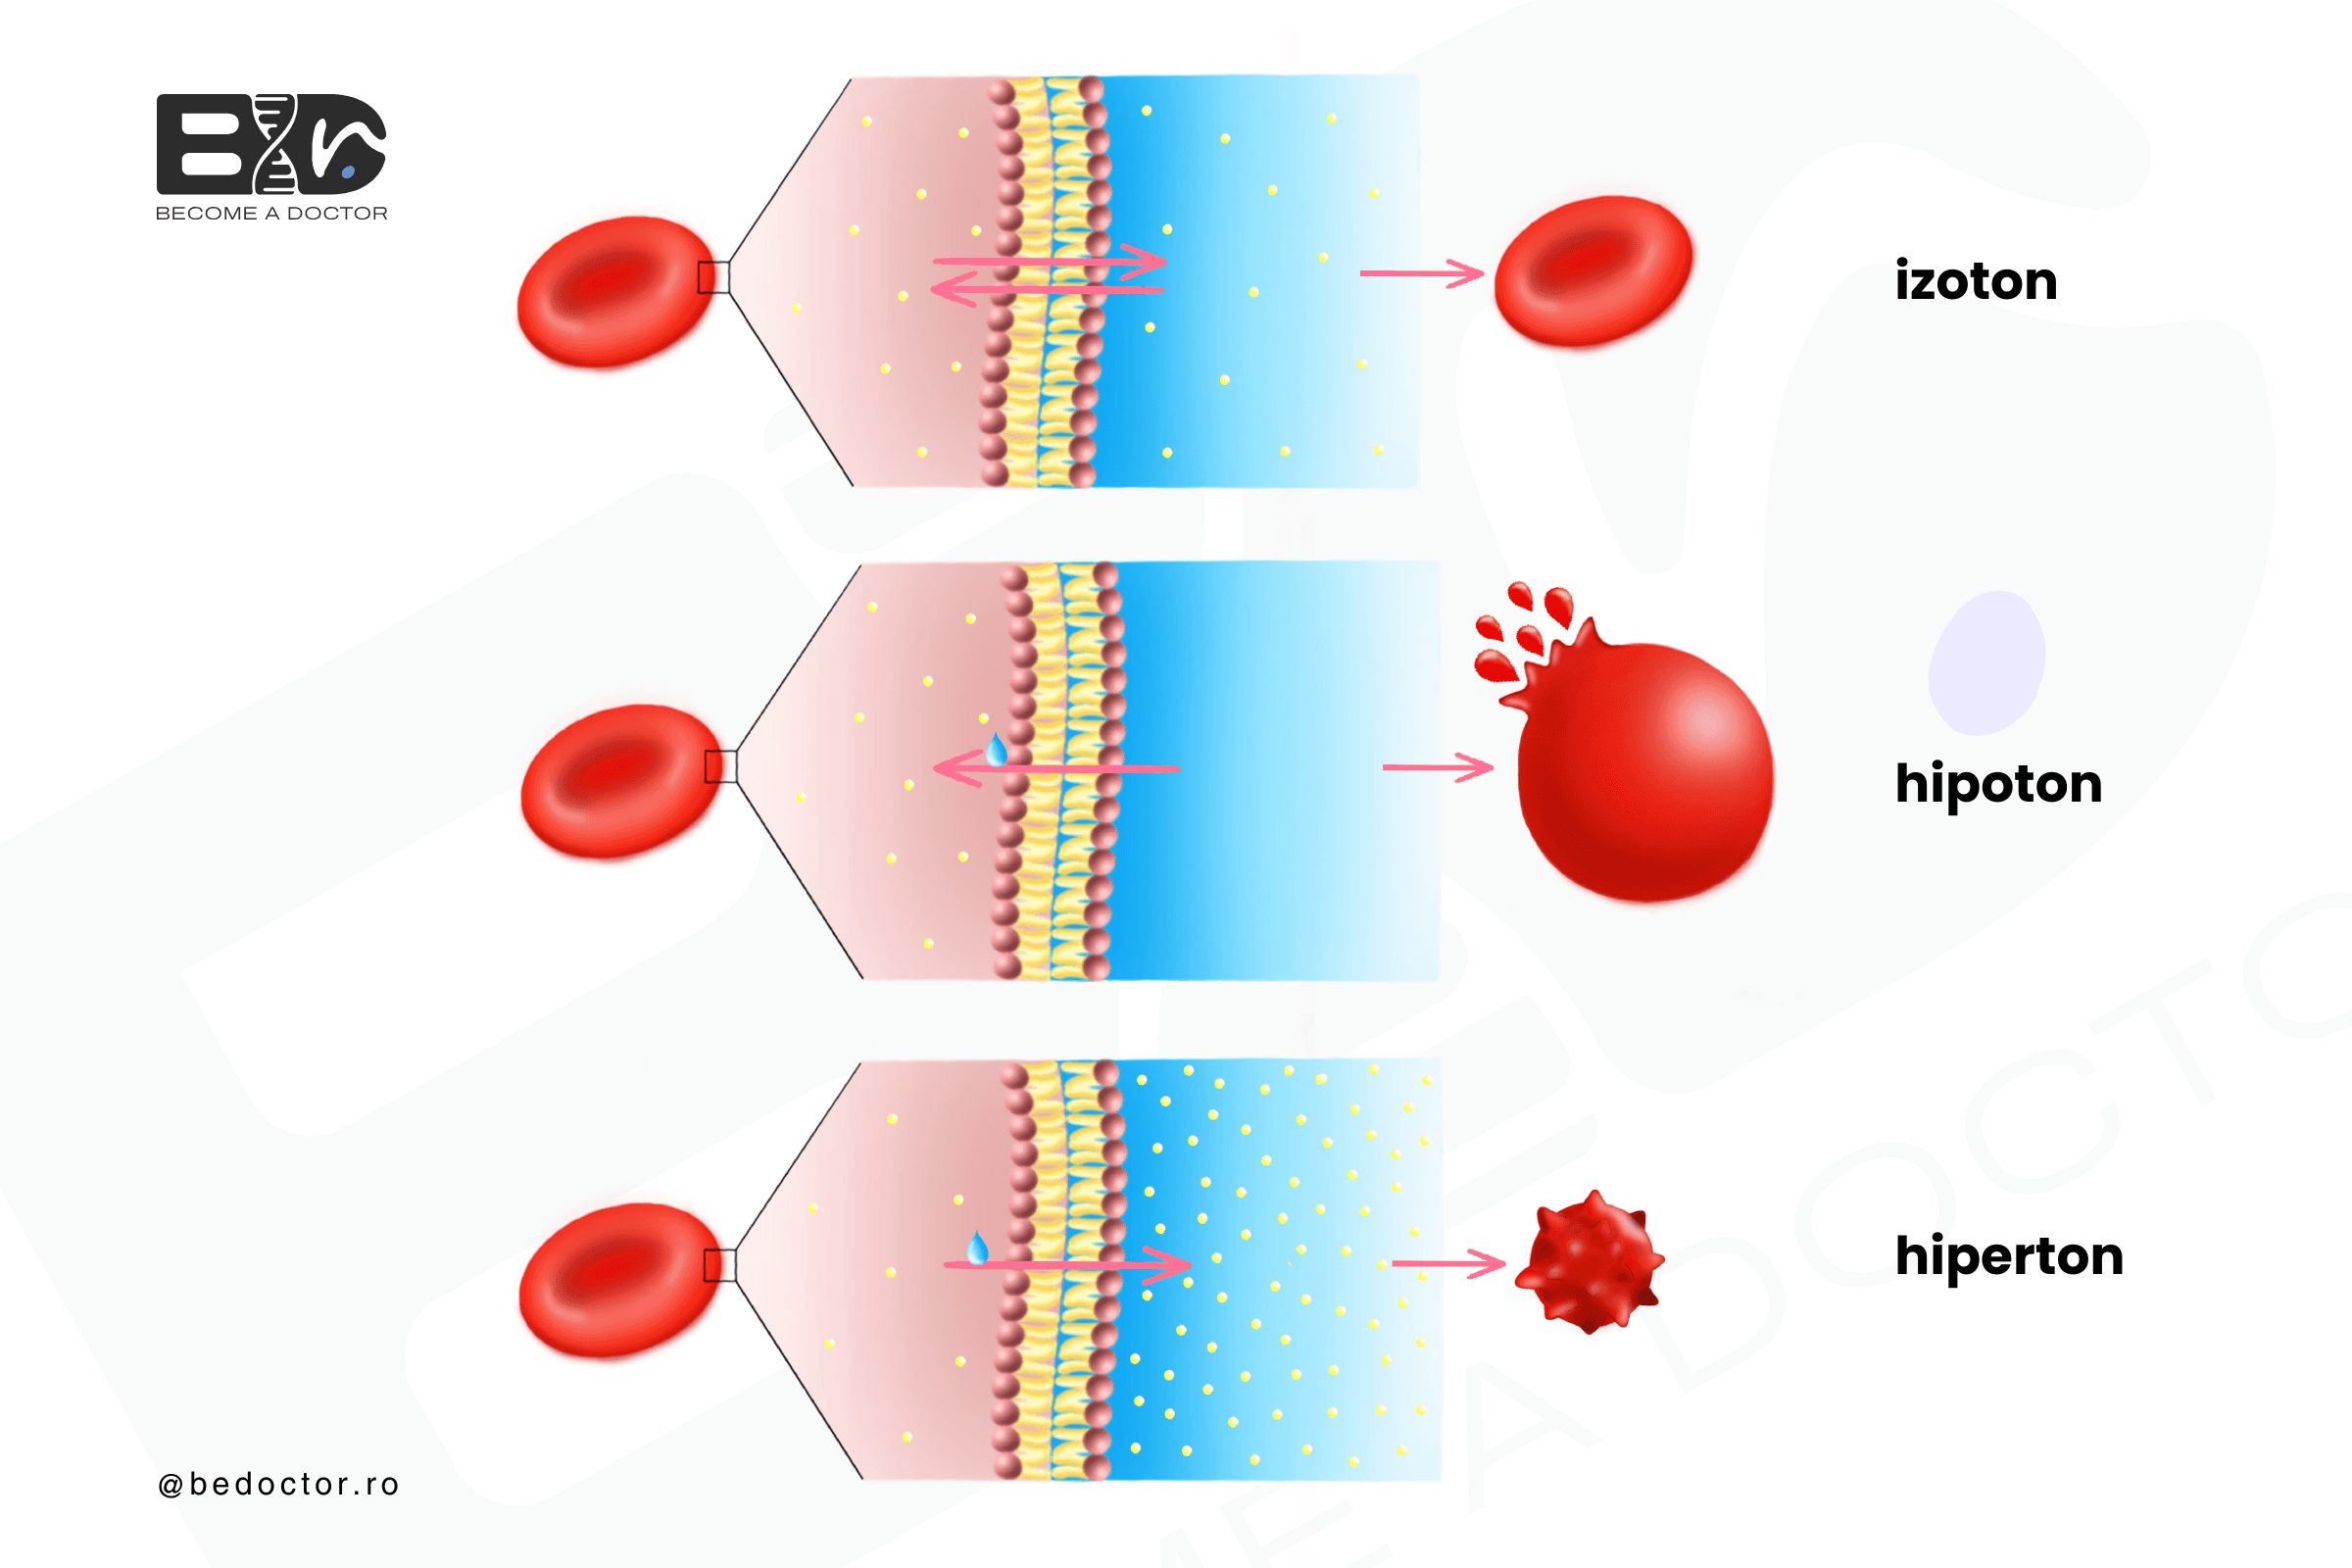
Figura nr. 3.2. Procesul de osmoză în trei medii diferite: (a) hiperton, apa iese și celula se zbârcește; (b) hipoton, apa intră și celula se umflă și se lizează; (c) izoton, concentrația solvitului este aceeași de ambele părți ale membranei.
CUM SE CITEȘTE FIGURA: Apa circulă în amândouă sensurile în toate cele trei medii; se schimbă raportul dintre cele două fluxuri, nu sensul lor: în hiperton ieșirea e mai mare, în hipoton intrarea, iar în izoton cele două sunt egale.
Celula din mediul izoton păstrează forma normală a hematiei, cu depresiunea centrală.
În mediul hipoton celula se umflă: depresiunea centrală dispare, iar hematia devine sferică.
Umflarea în hipoton merge până la liză: membrana se rupe, iar fragmente desprinse din celulă plutesc în mediu.
În hiperton membrana nu se rupe: celula zbârcită e mult mai îngustă decât cea izotonă și are marginea ondulată.
O altă modalitate de mișcare moleculară prin membrana celulară este difuziunea facilitată. Acest tip de difuziune este asistat de proteinele prezente în membrană. Acestea lasă să treacă doar anumite molecule prin membrană și permit mișcarea dintr-o zonă cu concentrație mare de molecule într-una cu concentrație mică. Numărul proteinelor transportoare determină rata cu care are loc difuziunea facilitată.
O modalitate suplimentară de transport a substanțelor prin membrană este transportul activ. În cadrul acestui mecanism, proteinele transportă compușii chimici prin membrană, dintr-o regiune cu concentrație mică într-una cu concentrație mare. Această mișcare se realizează „împotriva gradientului de concentrație” și necesită energie furnizată de adenozin trifosfat (ATP). De exemplu, transportul activ are loc în celulele nervoase unde ionii de sodiu sunt transportați în afara celulei, regiune care deja conține o concentrație mare de ioni de sodiu. Similar difuziunii facilitate, rata transportului activ este limitată de numărul proteinelor transportoare.
O ultimă modalitate de transport prin membrana plasmatică este endocitoza. În timpul endocitozei, o mică porțiune din membrana plasmatică se pliază și înglobează particule sau mici volume de lichid de la suprafața celulară. Membrana se închide, delimitând o veziculă ce se va desprinde și va migra în citoplasmă. Când endocitoza implică material solid, procesul se numește fagocitoză, iar când implică picături de lichid, se numește pinocitoză. Globulele albe, de exemplu, realizează endocitoză atunci când îndepărtează microbii din circulația sanguină.

Figura nr. 3.3. Comparație între pinocitoză și fagocitoză. (a) În pinocitoză celula preia în interiorul ei substanțe chimice dizolvate în apă. (b) Fagocitoza implică preluarea de particule solide.
Opusă endocitozei este exocitoza. În timpul exocitozei, substanțele se deplasează din interiorul unei celule spre mediul extern celular. Procesul este utilizat pentru secreția hormonilor de către celulele endocrine, pentru eliberarea neurotransmițătorilor la nivelul terminațiilor celulelor nervoase și pentru secreția de mucus de către celule în diferite organe. În timpul exocitozei, vezicule cu membrană migrează înspre membrana celulară, cu care fuzionează. Regiunea fuzionată se rupe, împrăștiind astfel conținutul veziculei în mediul extern. Exocitoza este o modalitate importantă de mișcare a moleculelor în celulele secretoare.
Nucleul
Cu excepția globulelor roșii, toate celulele umane au nucleu. Nucleul este compus în principal din histone (un tip de proteine) și acid dezoxiribonucleic, sau ADN. ADN-ul este organizat în unități liniare numite cromozomi. Segmentele funcționale ale cromozomilor sunt numite gene. Există circa 30.000 de gene în nucleii celulelor umane. Histonele oferă un cadru de sprijin pentru ADN. Ele se unesc cu ADN-ul pentru a forma structuri cu dimensiuni electronomicroscopice numite nucleozomi. Nucleozomii se înfășoară între ei și formează cromozomul.
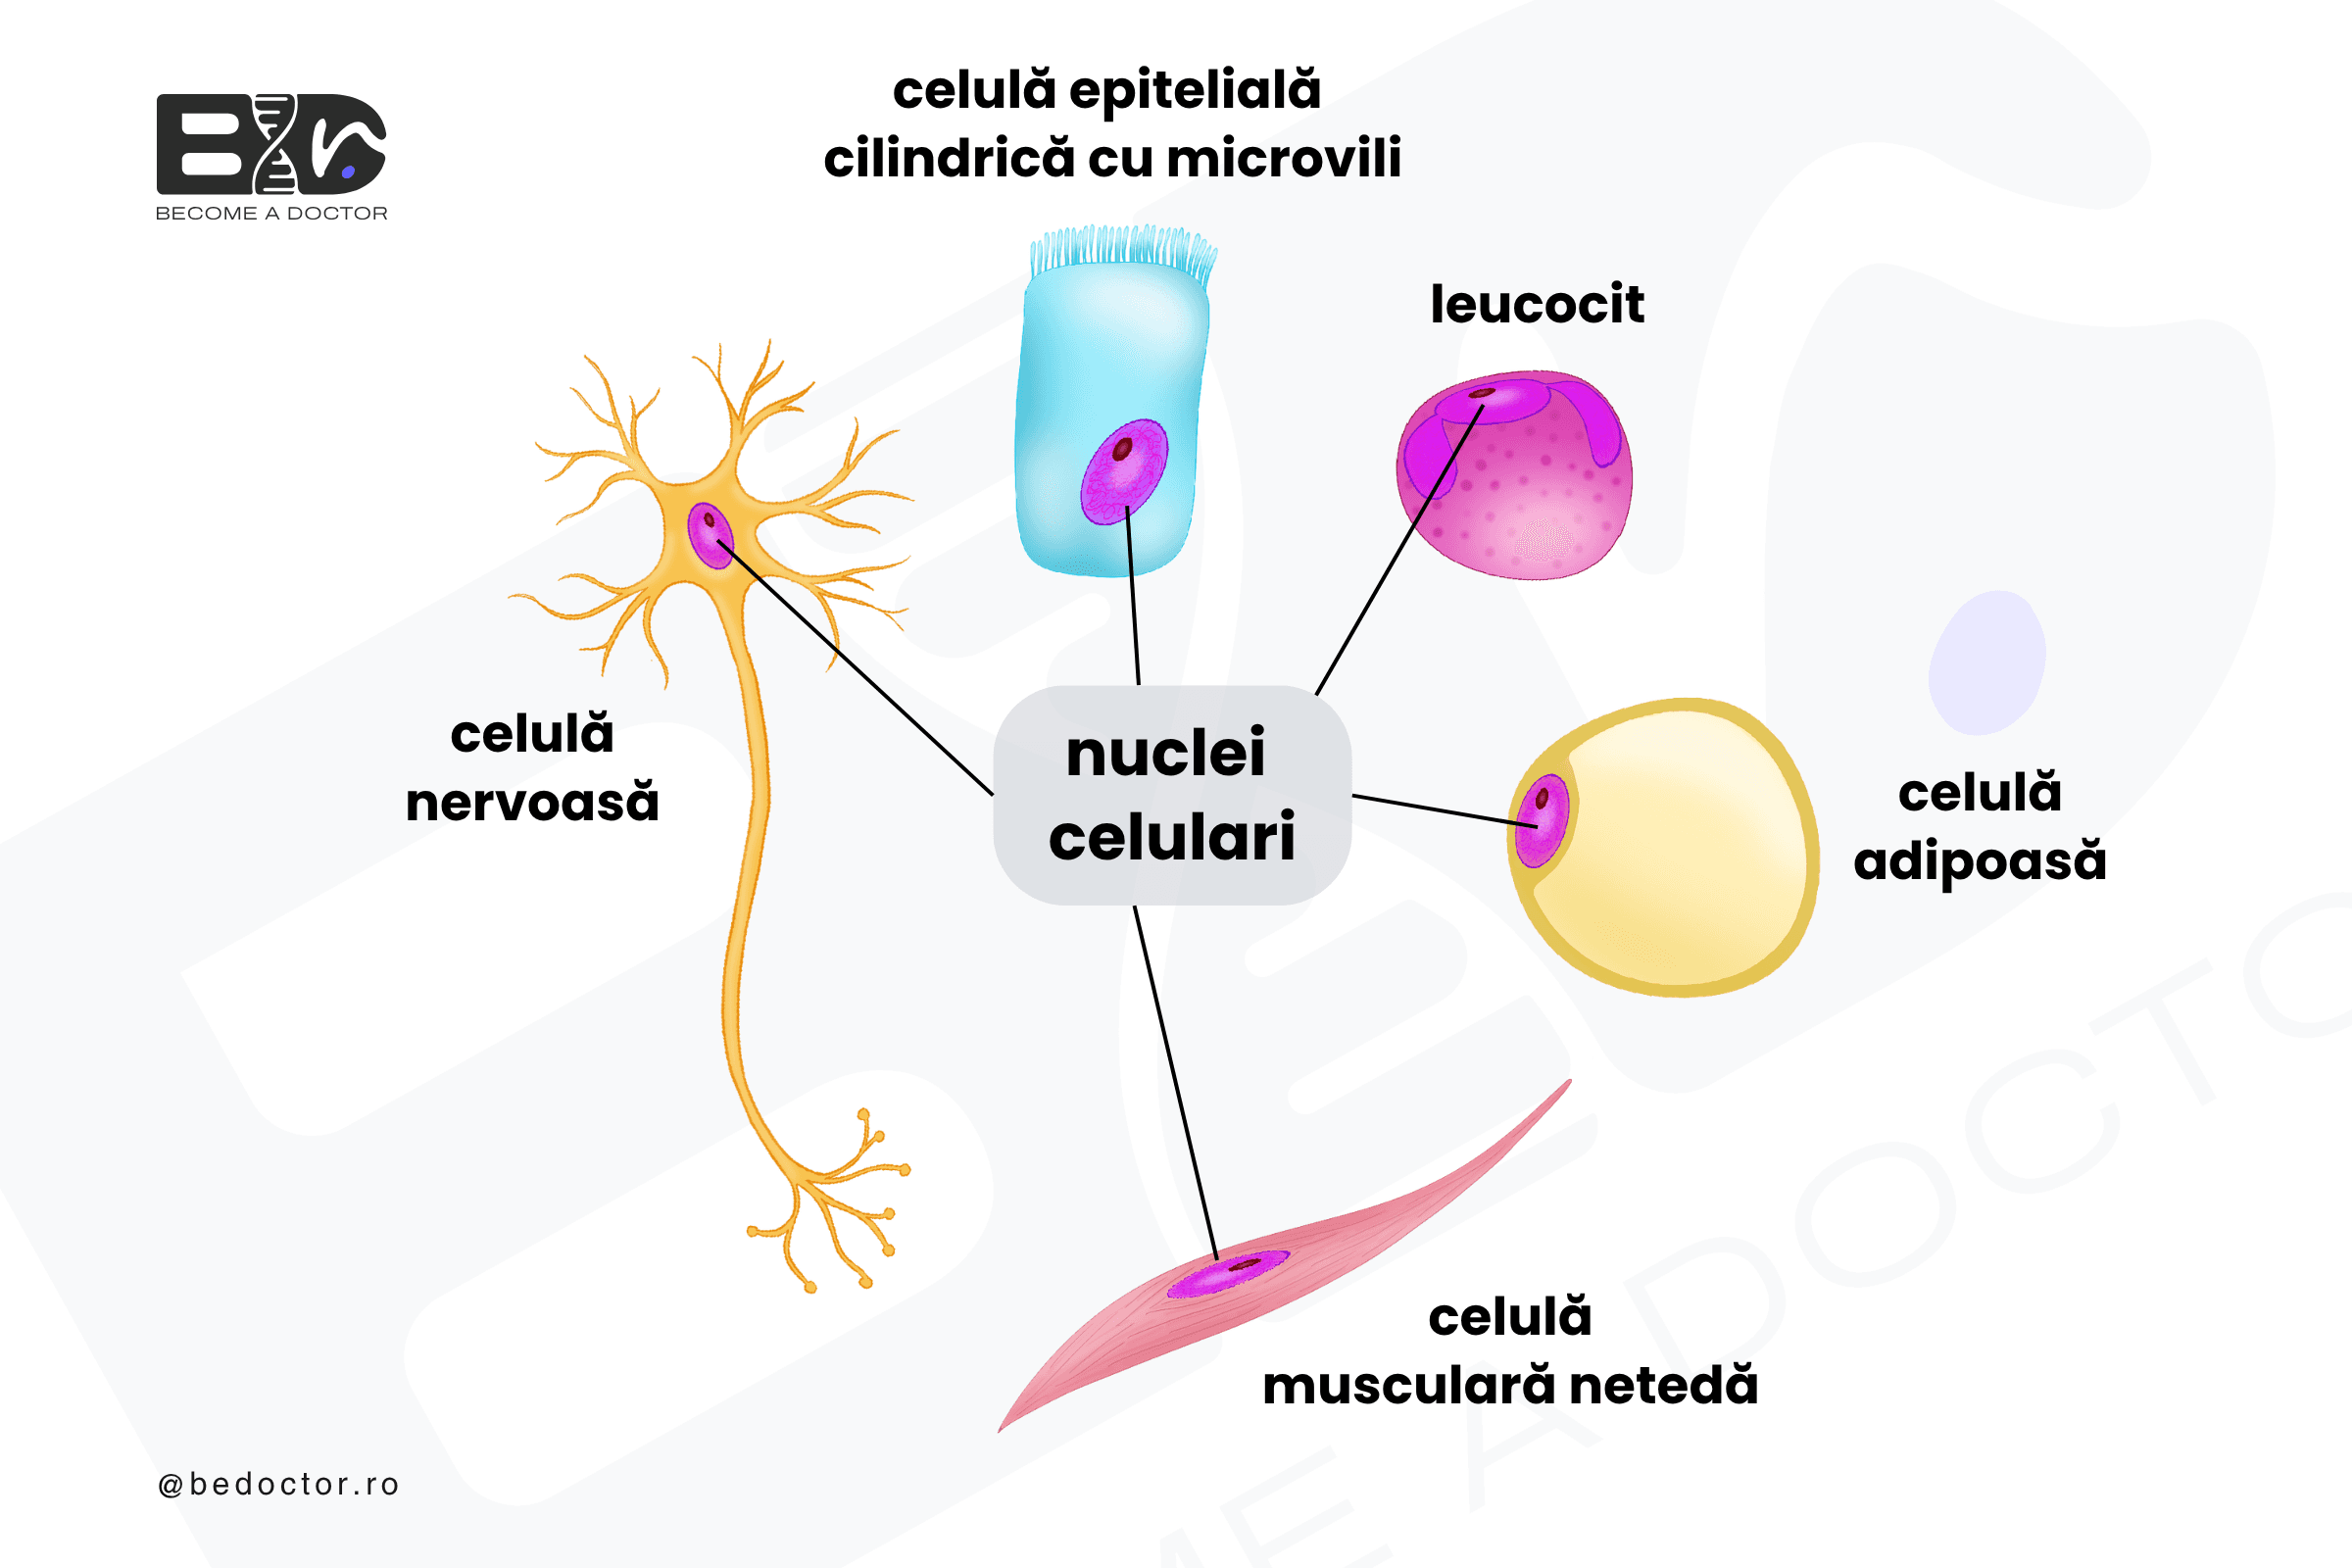
Figura nr. 3.4. Diverse tipuri de celule din organismul uman. De reținut că toate celulele au un nucleu, variabil ca poziție, formă și mărime.
CUM SE CITEȘTE FIGURA: Poziția nucleului deosebește cele cinci tipuri de celule, nu doar prezența lui.
Celula epitelială cilindrică ține microvilii adunați la un singur pol, iar nucleul e împins la polul opus, în treimea bazală.
Leucocitul are singurul nucleu lobat din cele cinci: o masă unică, încovoiată în potcoavă, care ocupă mai mult de jumătate din celulă.
Celula adipoasă e opusul leucocitului: nucleul e mic și turtit, lipit de membrana celulară, iar restul celulei e ocupat de picătura de grăsime.
Celula musculară netedă e fusiformă, cu nucleul alungit așezat central și cu axul lung paralel cu axul celulei.
Celula nervoasă scoate din corpul celular mai multe prelungiri scurte și ramificate, care radiază în toate direcțiile, plus o singură prelungire lungă, ramificată abia la capătul ei îndepărtat. Nucleul e mic, rotund, în corpul celular.
Nucleul celulelor umane este înconjurat de o membrană numită înveliș nuclear. Învelișul nuclear este o structură membranară dublă, alcătuită din două straturi duble de fosfolipide, dublu față de membrana plasmatică, care conține un singur strat dublu de fosfolipide. Porii din membrana nucleară permit mediului intern al nucleului să comunice cu citoplasma celulei.
În nucleu sunt două sau mai multe mase dense numite nucleoli. Nucleolii conțin acid ribonucleic sau ARN. Acest acid nucleic intervine în producerea subunităților unor particule submicroscopice numite ribozomi. Subunitățile produse sunt mai apoi asamblate în citoplasmă, rezultând ribozomii.
Citoplasma și organitele
Citoplasma este o substanță semilichidă, fundamentală pentru celulă. În citoplasmă au loc unele procese metabolice și sinteze proteice. Ea conține mai multe componente microscopice specializate numite organite („mici organe”), în care se desfășoară diverse funcții celulare.
Reticulul endoplasmatic este un organit alcătuit dintr-un ansamblu de membrane ce se extind intracitoplasmatic. În unele locuri, reticulul endoplasmatic prezintă atașate structuri submicroscopice numite ribozomi. Când sunt prezenți ribozomii, reticulul endoplasmatic se numește rugos. Când ribozomii lipsesc de pe suprafața lui, el se numește neted. Reticulul endoplasmatic rugos este sediul sintezei proteinelor, iar ribozomii sunt corpusculii în care aminoacizii sunt combinați chimic pentru a forma proteine. În reticulul endoplasmatic neted are loc sinteza lipidelor și a membranei, precum și depozitarea calciului.
Un alt organit este corpul Golgi (aparatul Golgi), alcătuit din mai mulți saci turtiți, de obicei curbați la capete. Sacii se unesc între ei parțial și formează vezicule asemănătoare unor picături. În aparatul Golgi, proteinele și lipidele celulare sunt procesate și împachetate în vezicule înainte de a fi transportate spre destinația lor finală.
Un alt organit este lizozomul, derivat din sacii aparatului Golgi. Lizozomul este o veziculă cu enzime folosite în procesele de digestie ale celulei. Enzimele sale degradează particulele nutritive pătrunse în celulă și pun la dispoziția celulei produșii finali.
Organitul în care este eliberată cea mai mare parte a energiei provenind din alimente este mitocondria. Aici se degradează molecule de glucide, lipide, proteine, iar energia este folosită pentru a forma molecule de ATP (adenozin trifosfat), care servesc nevoilor energetice ale celulei. Aceasta este o etapă importantă în respirația celulară. Deoarece sunt implicate în procesele energetice, mitocondriile mai sunt numite „generatoarele celulei”. În interiorul mitocondriei, respirația celulară este completă când oxigenul se combină cu hidrogen și electroni ca să formeze apă. Mitocondriile folosesc oxigenul provenit din aerul inspirat. Acesta este exact motivul pentru care trebuie să respirăm oxigen: fără oxigen, mitocondria produce insuficient ATP. Fără ATP în cantitate adecvată, celulele mor. Când prea multe celule mor din cauza lipsei oxigenului și a ATP-ului, organismul nu supraviețuiește.
CAPCANĂ DE GRILĂ: Prima etapă a respirației celulare, glicoliza, are loc în citoplasmă, nu în mitocondrie, și e anaerobă; abia etapele următoare se petrec în mitocondrie.
O altă structură celulară este citoscheletul, o rețea interconectată de fibre, filamente și molecule îmbinate, care servește drept structură de suport a celulei. Componentele principale ale citoscheletului sunt: microtubulii, microfilamentele și filamentele intermediare. Toate componentele citoscheletului sunt alcătuite din subunități proteice.
Unele celule umane au o extensie numită flagel, iar alte celule au cili:
Flagelul este lung, asemănător unui fir de păr, asigurând mișcarea unor celule, precum spermatozoizii.
Cilii sunt mai scurți și mult mai numeroși decât flagelii. În celulele umane care căptușesc căile aeriene superioare și tractul respirator, cilii se ondulează în mod sincron, deplasând stratul de mucus cu particulele străine prinse în el.
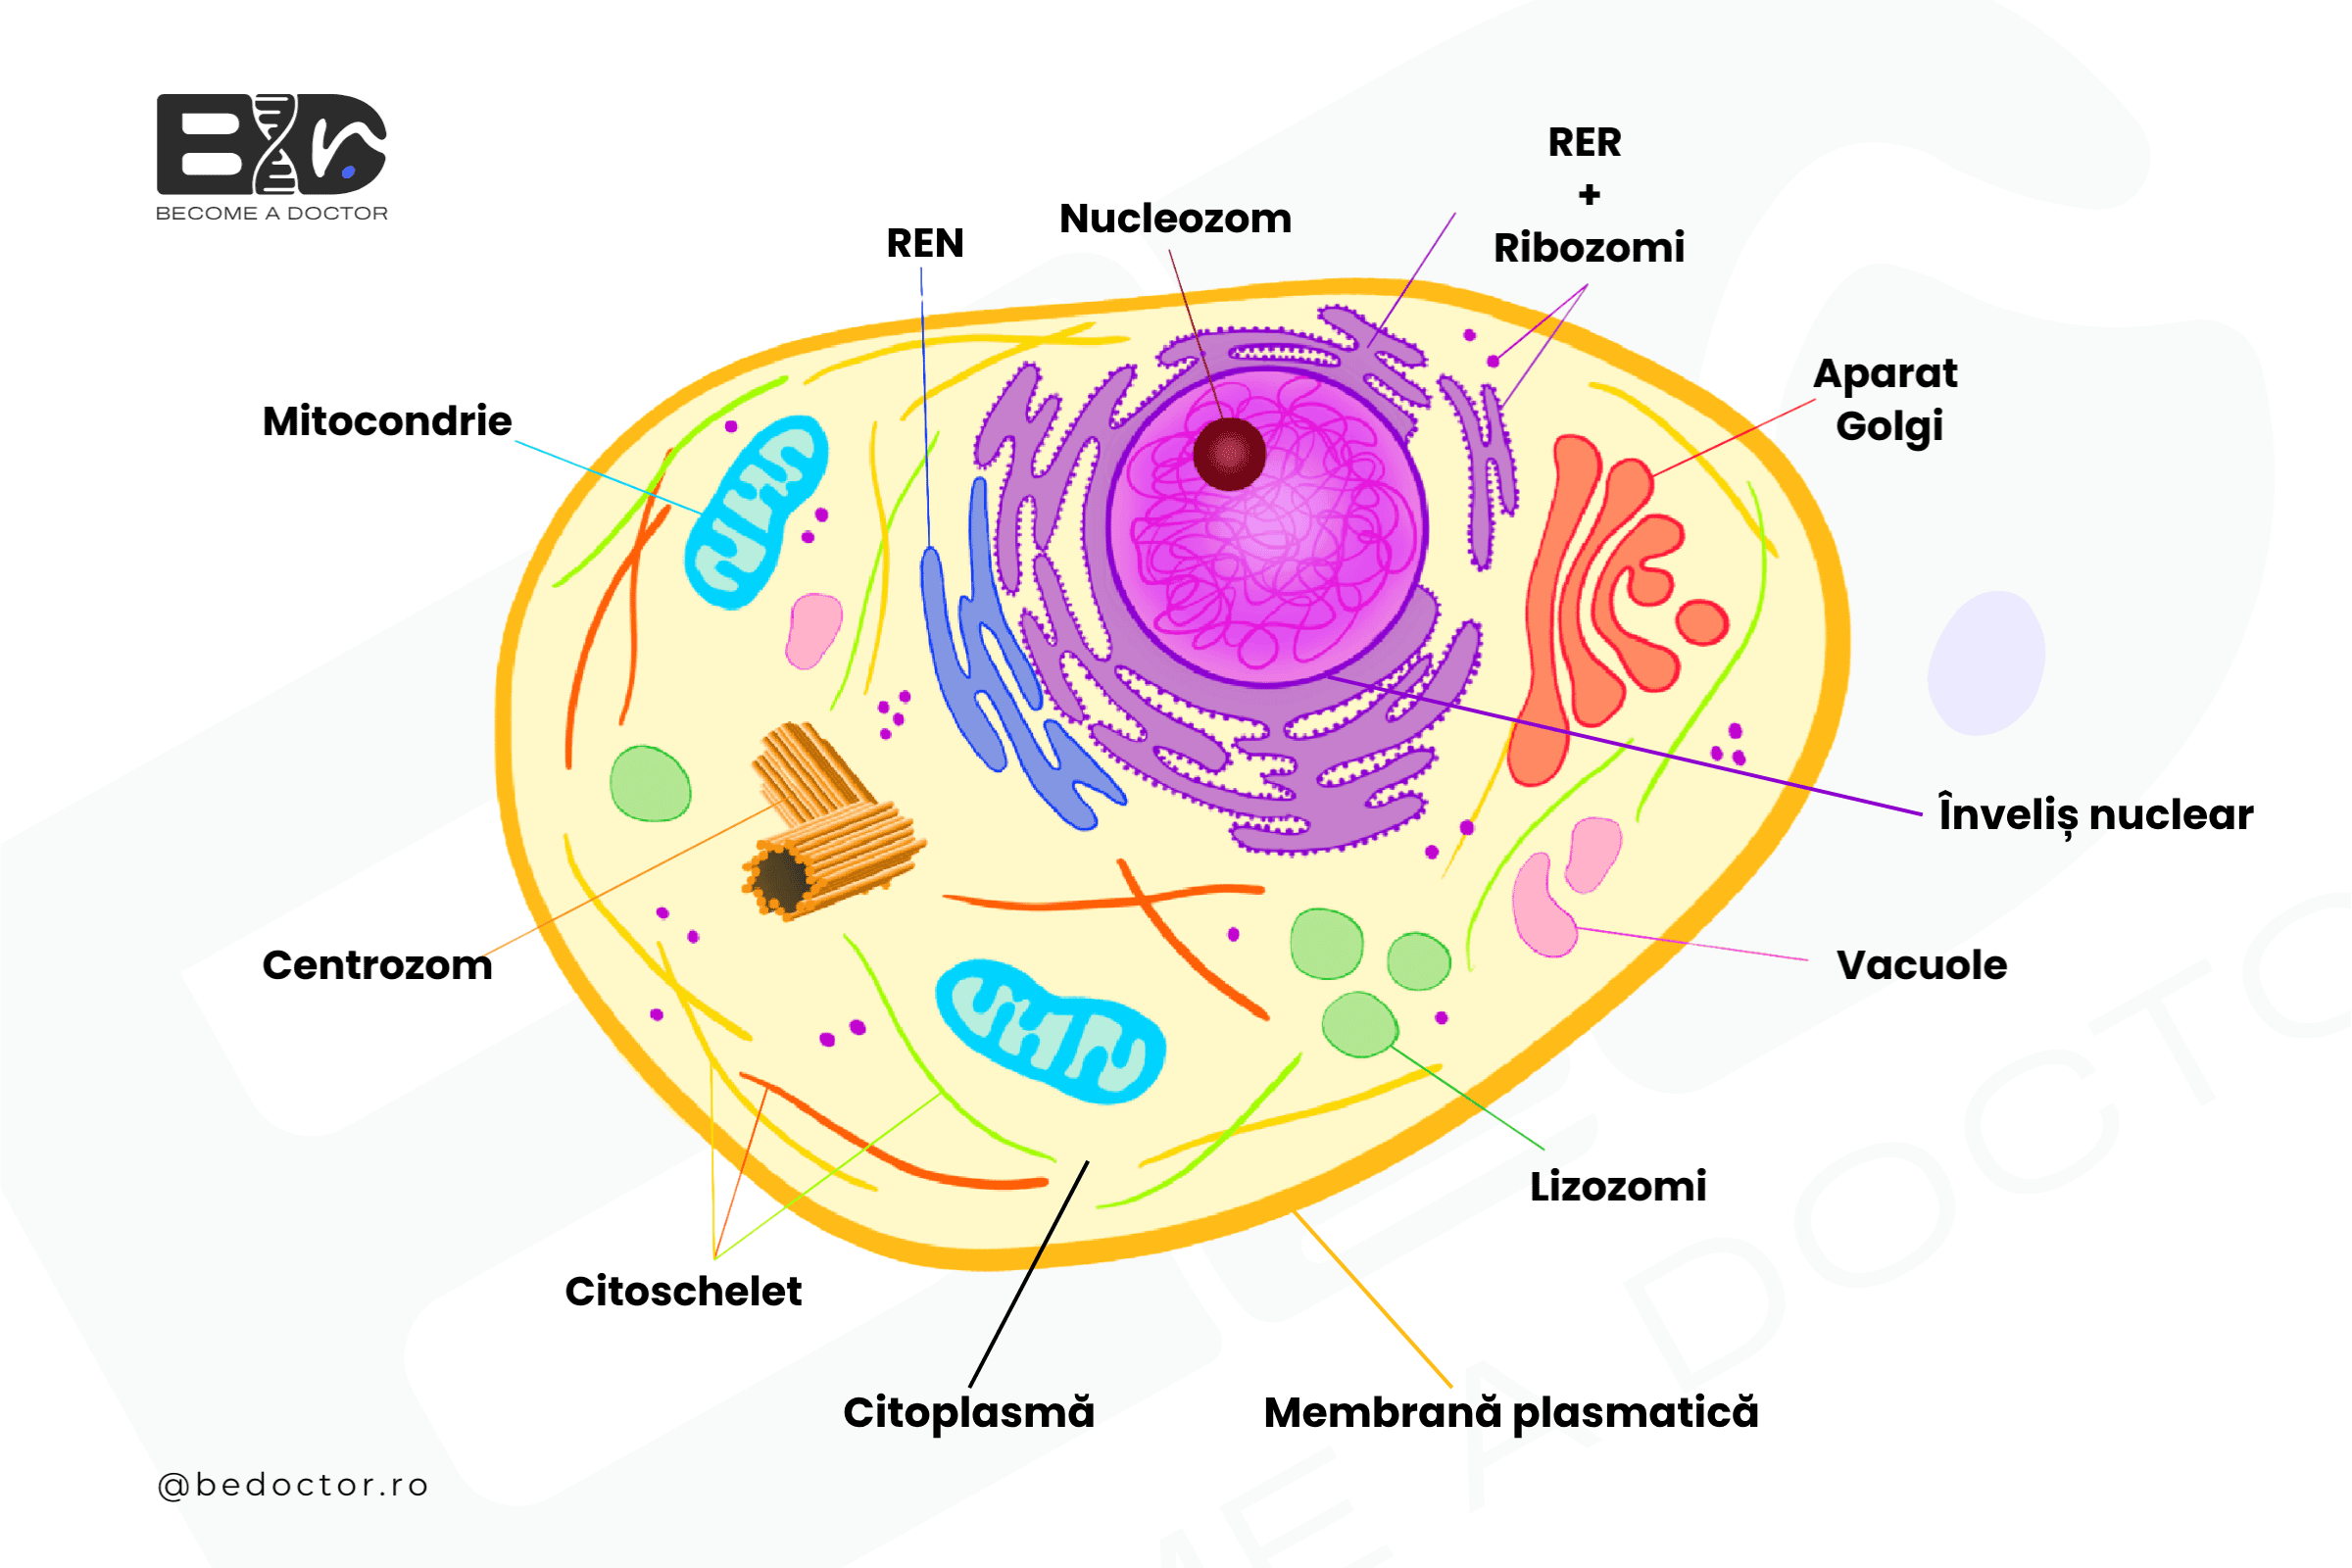
Figura nr. 3.5. Reprezentarea celulei umane tipice cu diverse organite. Pentru evidențierea detaliilor, unele dintre organitele foarte mici sunt reprezentate la o scală mai mare.
CUM SE CITEȘTE FIGURA: Reticulul rugos și cel neted sunt două zone ale aceleiași rețele, deosebite exclusiv prin ribozomii de pe membrane.
Rugosul e mai aproape de nucleu, netedul mai departe, în continuarea lui.
Aparatul Golgi e un teanc de saci turtiți și curbați, cu concavitatea orientată spre nucleu, așezat între nucleu și membrana plasmatică; veziculele se desprind de la capetele sacilor.
Centriolul stă lângă învelișul nuclear, unul singur.
Vacuola e un sac rotund, fără conținut granular.
Porul nu e o structură adăugată, ci o întrerupere a membranei duble a învelișului nuclear.
Nucleolul e o masă unică, fără membrană proprie, și ocupă o bună parte din interiorul nucleului.
Mitocondriile sunt ovale, cu falduri interne transversale.
Lizozomii sunt mai mulți într-o celulă, vezicule rotunde cu conținut granular.
Organit sau component | Structura | Funcții |
|---|---|---|
Reticul endoplasmatic | Rețea de membrane interconectate alcătuită din saci și canale | Sinteză proteică, sinteza membranelor |
Ribozomi | Particule compuse din proteine și ARN | Corpusculi în care se sintetizează proteine |
Aparat Golgi | Grup de saci membranoși turtiți | Împachetarea moleculelor proteice pentru secreție și transport către alte organite |
Mitocondrie | Sac membranos cu partiție interioară | Eliberarea energiei din moleculele de alimente și sinteza ATP |
Lizozomi | Saci membranoși | Conțin enzime pentru digestia intracelulară |
Centrozomi | Structură nonmembranoasă compusă din doi centrioli în formă de tijă | Facilitarea distribuției cromozomilor către celulele fiice în timpul reproducerii celulare și inițierea formării cililor |
Cili și flageli | Formațiuni asemănătoare firelor de păr atașate corpusculilor bazali de sub membrana celulară | Propulsia fluidelor pe suprafețe celulare; permite mișcarea anumitor celule |
Vezicule | Saci membranoși | Conțin diverse substanțe transportate în celulă |
Microfilamente, microfilamente intermediare și microtubuli | Tije fine și tubuli | Suport pentru citoplasmă, deplasarea particulelor în citoplasmă; alcătuiesc citoscheletul |
Înveliș nuclear | Membrană poroasă dublă ce separă conținutul nuclear de citoplasmă | Menține forma nucleului și controlează pasajul substanțelor între nucleu și citoplasmă |
Nucleol | Corpuscul dens, fără membrană, alcătuit din proteine și ARN | Conține materiale necesare pentru formarea ribozomilor |
Cromatină | Fibre compuse din proteine și molecule ADN | Conține informația genetică pentru sinteza proteică |
Membrană celulară | Membrană compusă în principal din molecule proteice și lipidice | Menține forma celulei și controlează pasajul substanțelor în și din celulă |
Tabelul nr. 3.2. Structura și funcția organitelor și a altor componente celulare.
Celulele și energia
Viața poate exista doar dacă moleculele și celulele rămân organizate, iar această organizare necesită energie. Fizicienii definesc energia ca fiind capacitatea de a efectua o activitate; în acest caz, activitatea reprezintă continuitatea vieții celulare și umane.
Practic, fiecare reacție chimică a organismului implică schimb de energie și, de obicei, când are loc o reacție se înregistrează o pierdere de energie măsurabilă. Acest principiu derivă dintr-o lege a termodinamicii care spune că energia într-un sistem închis, ca de exemplu o celulă, descrește continuu. Pentru a compensa această scădere, celulelor corpului uman trebuie să le fie furnizată energie din hrană.
Energia este necesară majorității reacțiilor chimice, deoarece compușii chimici nu se combină între ei automat și nici nu se degradează spontan. Pentru a începe o reacție chimică, este nevoie de un aport de energie numit energie de activare. De exemplu, hidrogenul și oxigenul se pot combina în mitocondrie pentru a forma apă, însă acestei reacții chimice trebuie să-i fie furnizată energie de activare.
Orice reacție chimică în care se eliberează energie se numește reacție exergonică. Într-o reacție chimică exergonică, produșii de reacție conțin mai puțină energie decât reactanții. În celelalte reacții chimice, numite reacții endergonice, energia se obține din alte surse și se depozitează în diverse forme.
Enzimele
Energia de activare necesară pentru a iniția o reacție exergonică sau endergonică poate fi termică sau chimică. Reacțiile chimice care necesită energie de activare pot fi produse prin catalizatori biologici numiți enzime. Enzimele sunt proteine care accelerează reacțiile chimice, ele însele rămânând neschimbate. În concluzie, ele scad cantitatea de energie de activare necesară pentru o reacție chimică.
Fiecare enzimă catalizează doar o reacție; într-o celulă există mii de enzime diferite ce catalizează mii de reacții chimice diferite. Substanța asupra căreia acționează o moleculă enzimatică se numește substrat. Produșii unei reacții catalizate de o enzimă se numesc produși finali. O porțiune cheie a unei enzime, numită zonă activă, interacționează cu substratul pentru a forma produșii finali.
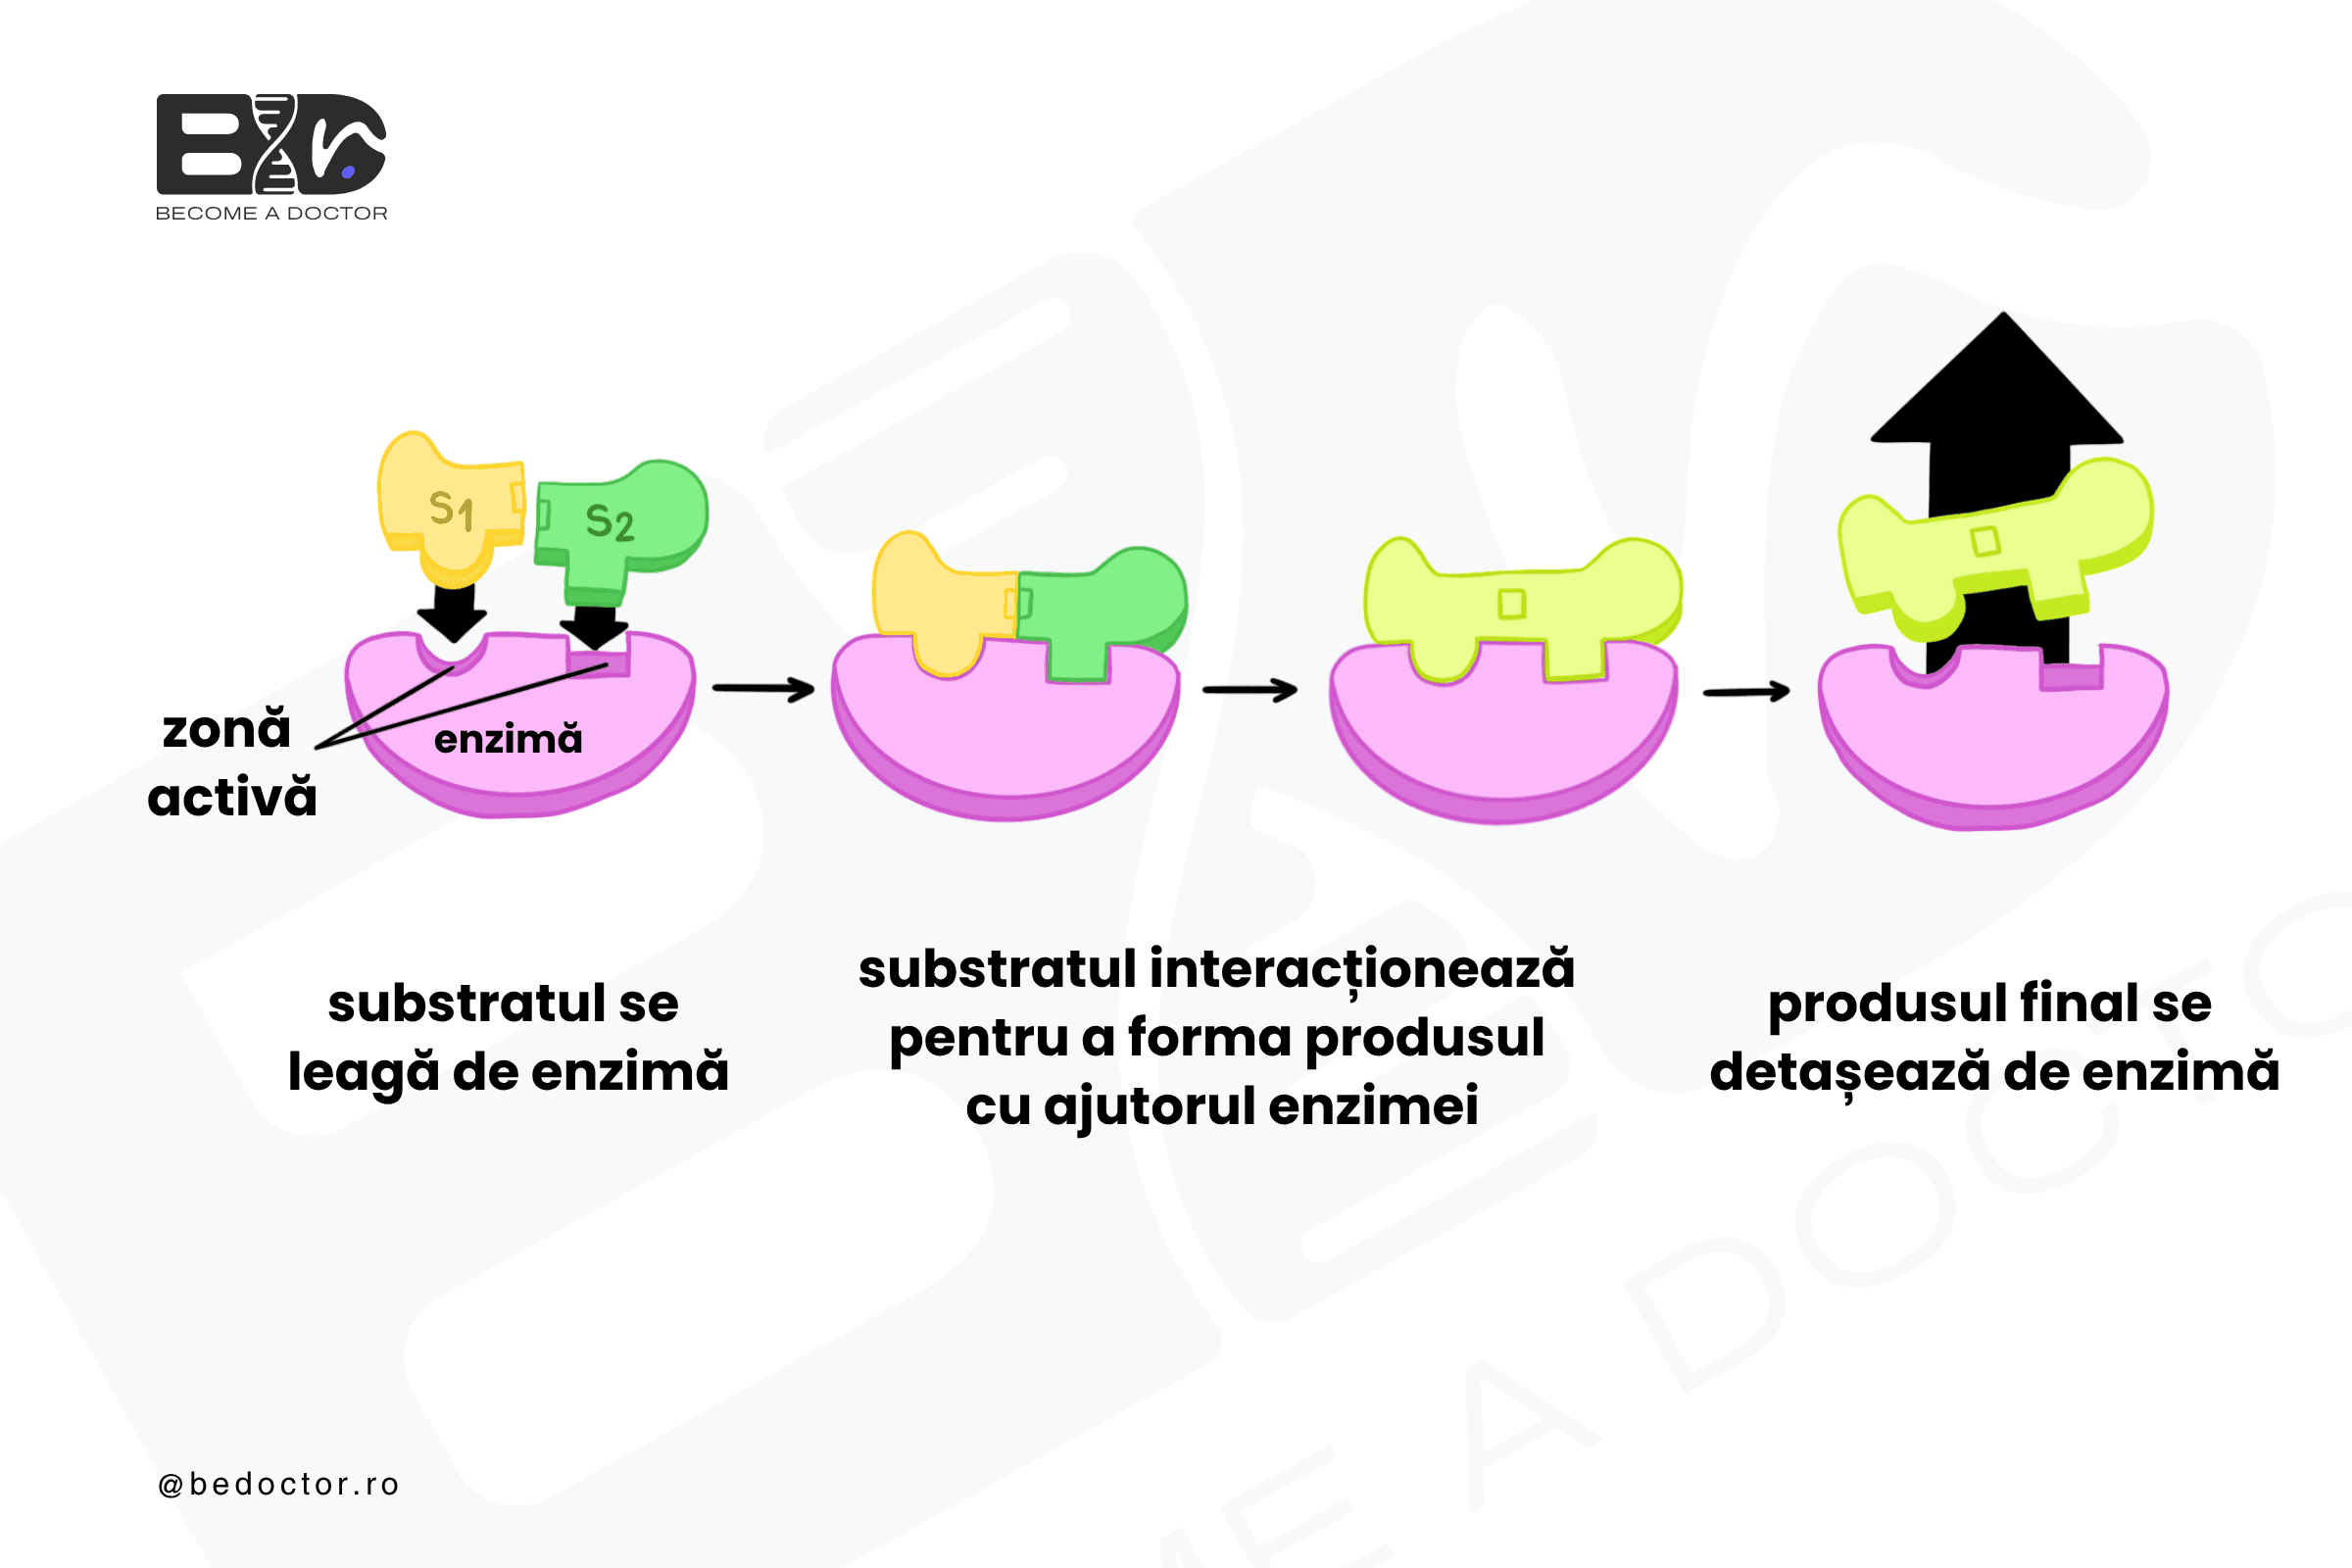
Figura nr. 3.6. Activitatea enzimatică. O enzimă are o zonă activă specifică unde se leagă o pereche de molecule de substrat. Acest compus se detașează și enzima este liberă să participe la o altă reacție chimică.
CUM SE CITEȘTE FIGURA: Specificitatea enzimei e o potrivire geometrică: zona activă are două cavități cu forme diferite, iar fiecare substrat intră numai în cavitatea lui.
Cele două substrate se leagă de enzimă deodată.
Enzima nu se consumă și nu se deformează: după desprinderea produsului rămâne cu ambele cavități intacte.
Produsul se desprinde de pe aceeași față a enzimei pe care s-au legat substratele, iar enzima rămâne liberă pentru o altă reacție.
Cu câteva excepții, denumirea enzimelor se termină în „-ază”. De exemplu, catalaza este enzima care degradează apa oxigenată (peroxidul de hidrogen) în apă și oxigen. Exemple de alte enzime: amilază, hidrolază, peptidază și kinază.
De obicei reacțiile enzimatice se desfășoară în câteva milisecunde. Viteza unei reacții catalizate enzimatic depinde de un număr de factori, printre care concentrația substratului, aciditatea și temperatura mediului. La temperaturi ridicate, reacțiile enzimatice au loc mult mai rapid, însă excesul de căldură poate provoca modificarea structurii proteice și denaturarea enzimei (pierderea structurii fizice).
Enzimele conlucrează în cadrul căilor metabolice. O cale metabolică este o secvență de reacții chimice ce are loc într-o celulă. Anumite căi metabolice utilizează catabolismul, adică degradarea sau digestia moleculelor mari, complexe. Alte căi metabolice implică anabolismul, care reprezintă sinteza de molecule mari.
Adenozin trifosfatul
Adenozin trifosfatul (ATP) este o substanță chimică ce servește drept sursă de energie imediată pentru toate celulele organismului. Energia produsă în timpul reacțiilor exergonice ale catabolismului este stocată în moleculele de ATP.
O moleculă de ATP are 3 părți: un inel dublu de atomi de carbon și azot numit adenină, o glucidă cu 5 atomi de carbon numită riboză și trei unități fosfat. Unitățile fosfat sunt unite printr-o legătură covalentă cu nivel energetic ridicat. Când o moleculă de ATP este folosită pentru a furniza energie, gruparea terminală fosfat este eliberată sub formă de ion de fosfat, degajând aproximativ 7,3 kilocalorii de energie per mol de ATP. Această energie este disponibilă pentru a asigura activitatea celulei.
Mitoza și reproducerea celulei
Una dintre caracteristicile distincte ale celulei vii este capacitatea de a se reproduce. În unele părți ale corpului, precum tractul gastrointestinal, celulele se divid frecvent. În alte părți ale corpului, cum ar fi sistemul nervos, celulele se divid mai rar. Cu excepția a doar câtorva tipuri de celule mature (ca de exemplu globulele roșii), toate celulele corpului uman se divid.
Structura și conținutul nucleului sunt direct implicate în reproducerea celulară. Materialul nuclear constă din proteine și ADN, care este alcătuit din nucleotide legate unele de altele prin legături covalente. Pentru a forma un cromozom, ADN-ul este condensat și părți din el sunt înfășurate în jurul complexelor de histone pentru a obține unități numite nucleozomi. Fiecare cromozom este alcătuit din milioane de nucleozomi. Supraspiralizarea nucleozomilor determină compactarea suplimentară a ADN-ului, determinând formarea cromozomilor condensați. Când cromozomii se despiralizează și nu se mai pot distinge unul de altul, masa dispersată de ADN și proteinele lui asociate se numește cromatină.
Ciclul celular
Ciclul celular este repetarea creșterii și reproducerii celulare. Ciclul este împărțit în două perioade principale: interfaza și mitoza:
Interfaza este perioada în care se desfășoară toate activitățile specifice unei celule. De asemenea replicarea ADN-ului are loc în timpul interfazei.
Mitoza este perioada ciclului celular în care ADN-ul nuclear al celulei este împărțit în două celule fiice. Diviziunea efectivă a celulei se numește citokineză.
Interfaza ciclului celular include trei faze distincte: faza G₁, faza S și faza G₂. Faza G₁ urmează după mitoză, fiind perioada în care celula sintetizează proteine structurale și enzime, și crește în dimensiuni. Cromozomii se găsesc sub formă de cromatină despiralizată.
În faza S a ciclului celular continuă creșterea, ADN-ul din nucleu se replică, iar cromozomii despiralizați încă nu sunt vizibili. În timpul acestui proces fiecare cromozom este copiat cu acuratețe, astfel că, până la sfârșitul fazei S rezultă câte două cromatide pentru fiecare cromatidă prezentă în faza G₁. În celulele umane există 46 de cromozomi cu câte o cromatidă în faza G₁, iar după faza S tot 46 de cromozomi, dar cu câte două cromatide fiecare, atașate la centromer.
În faza G₂ celula continuă să crească și să funcționeze, în timp ce se pregătește de mitoză. Proteinele se organizează pentru a forma o serie de filamente, numite fus de diviziune. Fusul de diviziune este asamblat (reconstruit) pentru fiecare mitoză, apoi dezasamblat la finalul procesului. Filamentele fusului sunt alcătuite din microtubuli. Materialul nuclear se află încă sub formă de cromatină, moment în care mitoza poate începe.

Figura nr. 3.7. Ciclul celular. Sunt prezentate cele două perioade majore, interfaza și mitoza. Interfaza are 3 faze, mitoza are 4 faze.
CUM SE CITEȘTE FIGURA: Succesiunea ciclului e mitoză, G₁, S, G₂ și înapoi la mitoză.
Interfaza ține între două mitoze: începe după telofază și se termină la intrarea în profaza următoare.
Mitoza are patru faze, în ordine: profaza, metafaza, anafaza, telofaza.
Ciclul are două faze de creștere, G₁ și G₂, față de o singură fază de sinteză a ADN-ului, S.
Perioadă | Fază | Activitate |
|---|---|---|
Interfaza | G₁ | Activități normale ale celulei |
Interfaza | S | Sinteza ADN, a proteinelor și centriolilor |
Interfaza | G₂ | Proteinele microtubulilor formează fusul de diviziune, cromatina începe să se condenseze |
Mitoza | Profaza | Cromozomii duplicați se spiralează, nucleul și nucleolul dispar, fusul este complet, cromozomii se deplasează spre centrul celulei |
Mitoza | Metafaza | Centromerii se aliniază în placa metafazică (ecuatorială) |
Mitoza | Anafaza | Centromerii se clivează, cromatidele se deplasează către cei doi poli |
Mitoza | Telofaza | Cromozomii se despiralizează, se formează nucleul și nucleolul, fusul dispare, citokineza se finalizează |
Citokineza | - | Se formează linia de clivaj prin contracția microfilamentelor; citoplasma celulară se divide prin clivaj |
Tabelul nr. 3.3. Ciclul celular, cu activitatea fiecărei faze.
Mitoza
Termenul mitoză derivă din latinescul „mito”, care înseamnă „filament”. În timpul mitozei, (1) materialul nuclear devine vizibil sub formă de 46 de cromozomi; (2) cromozomii se organizează în centrul celulei; (3) cromatidele se separă și cele 46 de cromatide, pe care le numim acum cromozomi, se deplasează spre fiecare celulă nouă.
Mitoza este un proces continuu, și cuprinde mai multe etape succesive. Pentru comoditate și pentru a descrie mai ușor fiecare parte a procesului, oamenii de știință au împărțit mitoza într-o serie de faze numite profază, metafază, anafază și telofază.
Profaza mitozei începe cu condensarea cromatinei și formarea de filamente vizibile. Există câte două copii ale fiecărui filament cromozomial; copiile se numesc cromatide surori. Cele două cromatide surori sunt unite într-o regiune numită centromer. În timp ce se desfășoară profaza, perechile de cromatide și filamentele fusului de diviziune devin vizibile, nucleolii dispar, iar membrana nucleară se dezasamblează.
În celulele umane aflate în profază, două structuri microscopice, numite centrioli, migrează spre polii opuși ai celulei. Când centriolii ajung la poli, sunt înconjurați de microtubuli radiari numiți aster. Filamentele fusului de diviziune se extind spre polii opuși ai celulei. Cromatidele se atașează de filamentele fusului de diviziune prin intermediul unei structuri de la nivelul centromerului, numită kinetocor. Kinetocorii conțin o proteină motorie care asigură deplasarea cromozomilor prin celulă. În cele din urmă, toate perechile de cromatide ajung în planul ecuatorial al celulei, formând placa ecuatorială. Perechile de cromatide se aliniază în centrul celulei și astfel se termină profaza.
În metafază, toate perechile de cromatide sunt aliniate în planul ecuatorial, formând placa ecuatorială sau placa metafazică. Într-o celulă umană, la nivelul plăcii metafazice sunt aliniate 92 de cromatide în 46 de cromozomi. Fiecare cromozom este conectat la nivelul kinetocorului, cu care se atașează filamentele fusului de diviziune. În acest moment, cele două cromatide se separă una de cealaltă, fiecare dintre ele fiind denumită cromozom.
La începutul anafazei, cromozomii se îndepărtează unul de celălalt, fiecare cromozom fiind atașat unui filament al fusului de diviziune. Cromozomii sunt trași spre polii opuși ai celulei de către filamentele fusului de diviziune și pe măsură ce migrează iau forma literei „V”, deoarece fiind atașați de filamentele fusului doar în regiunea de mijloc (centromer), capetele cromozomului (telomere) rămân în urmă. Spre fiecare pol al celulei se deplasează câte 46 de cromozomi.
În telofază, cromozomii ajung la polii opuși ai celulei. În cursul acestei faze, cromozomii se despiralizează și se dispersează pentru a forma mase de cromatină. Fusul se dezasamblează, reapar nucleolii și se reface învelișul nuclear.
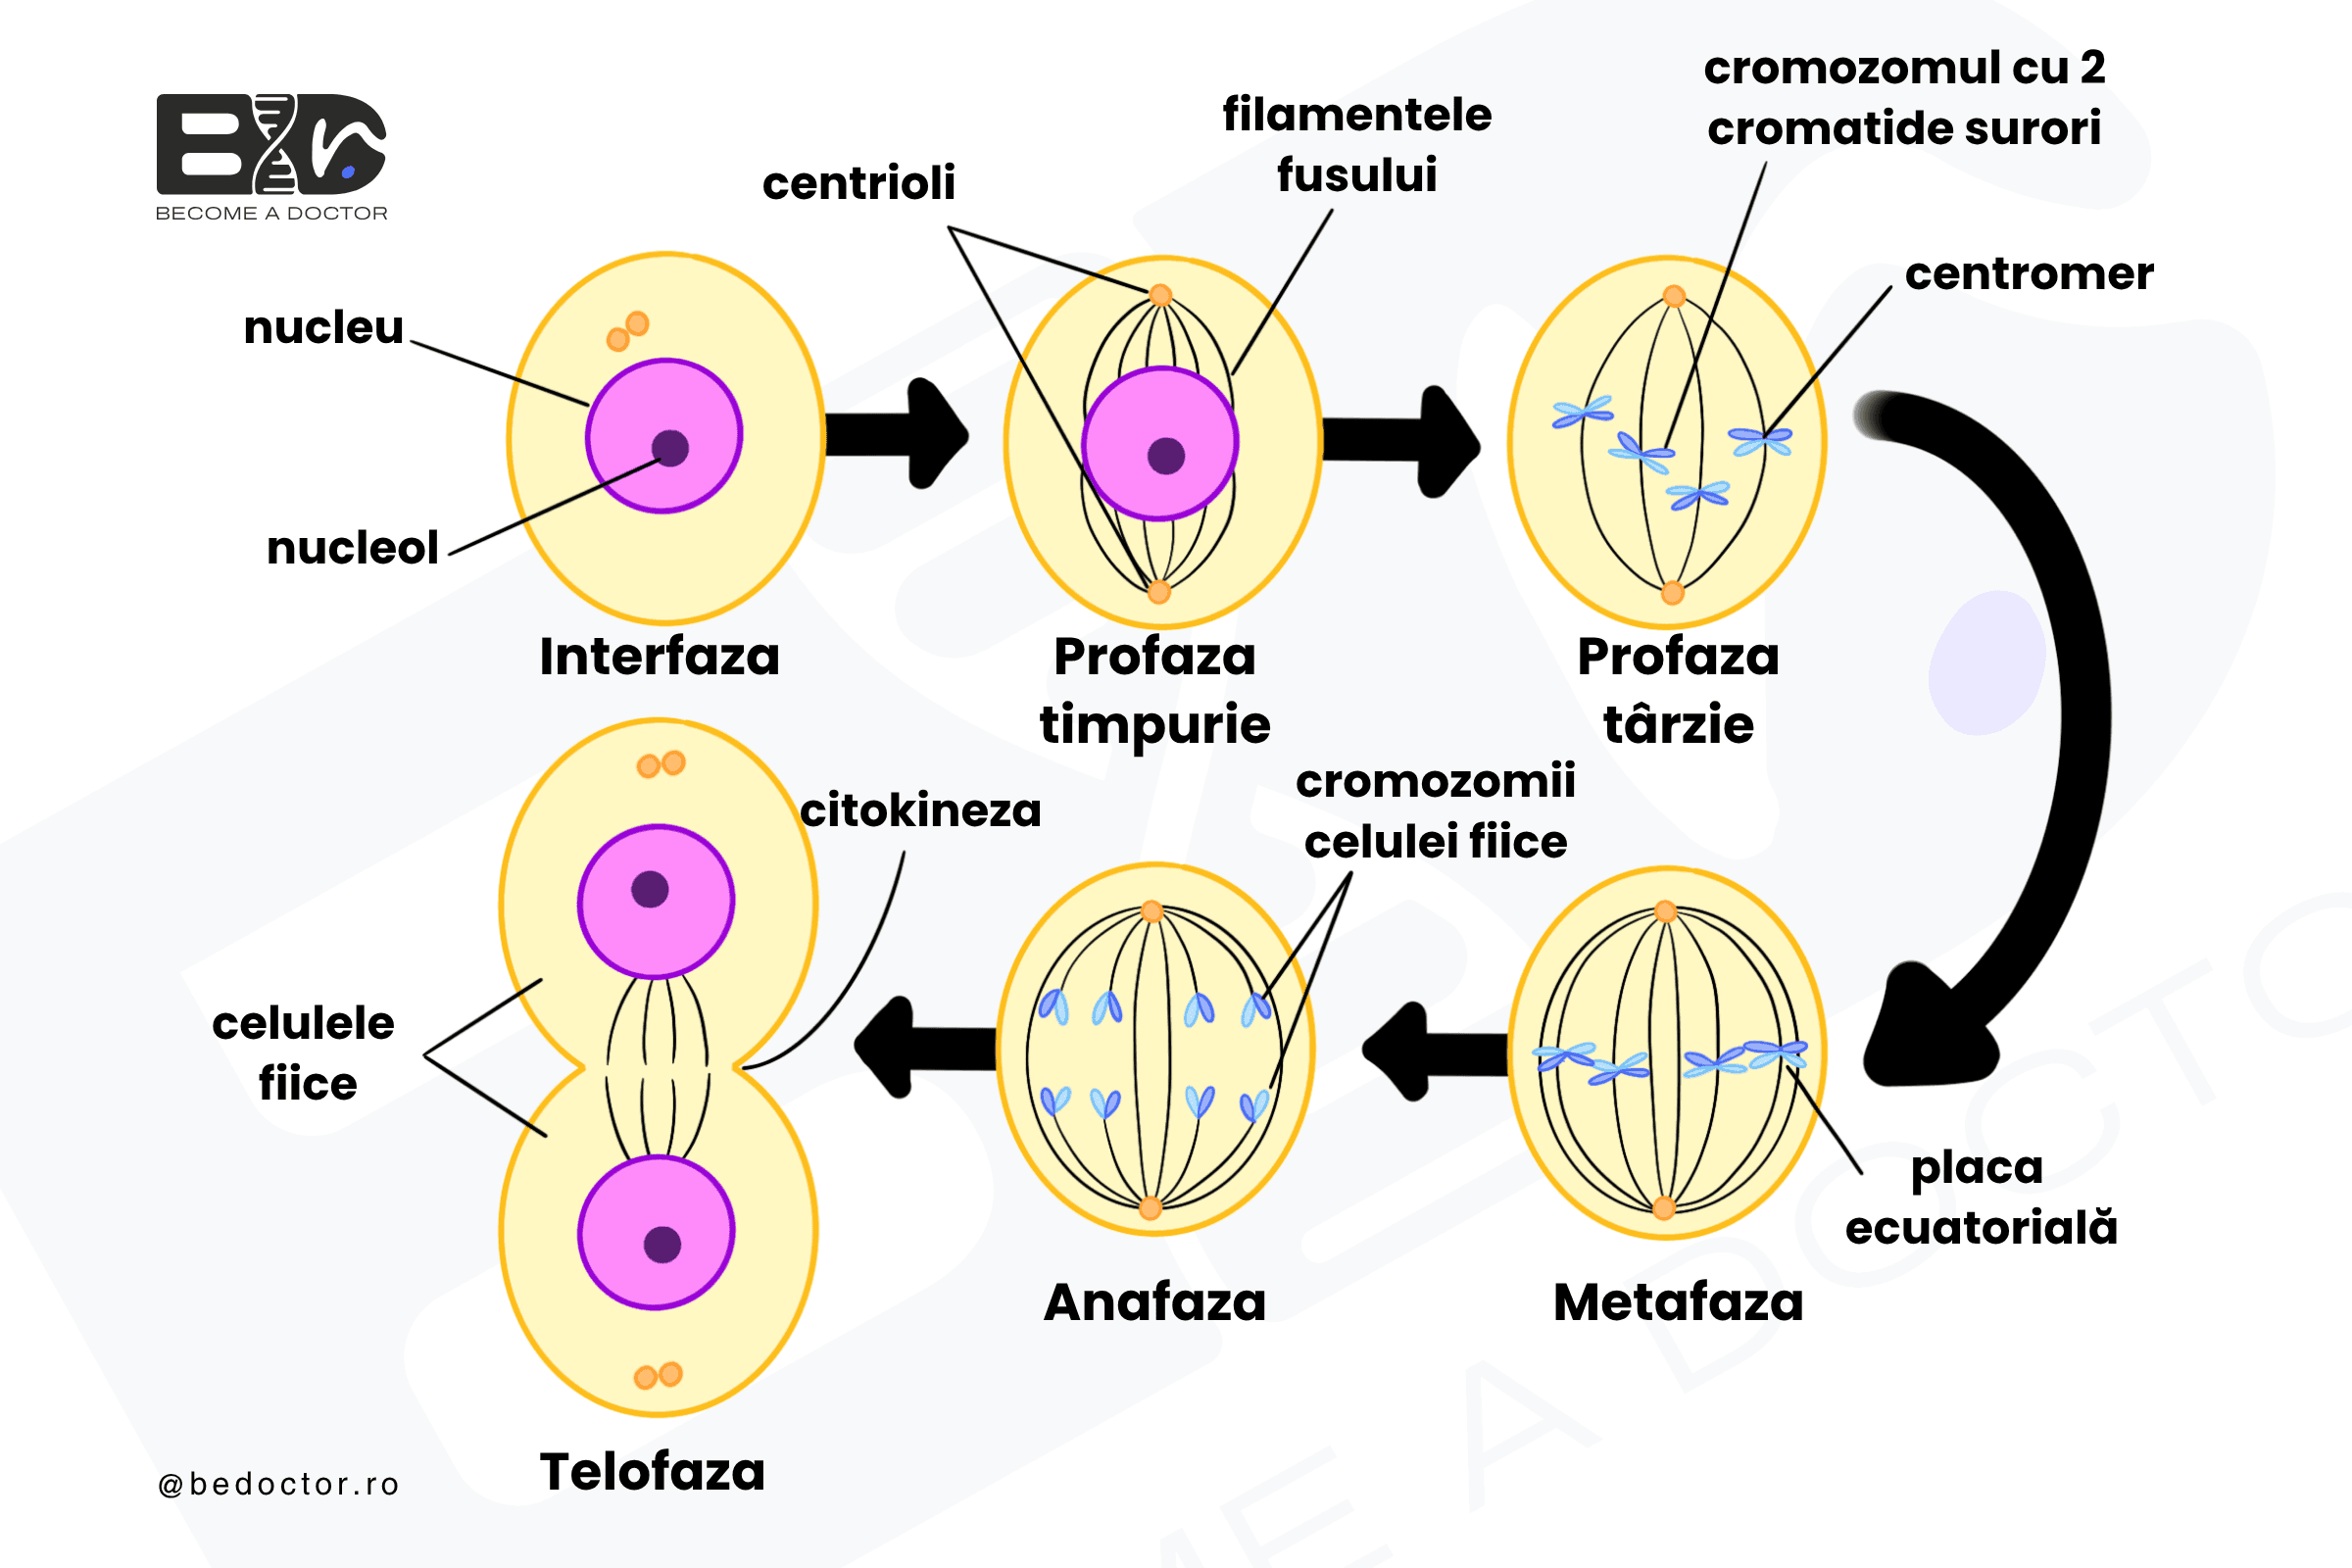
Figura nr. 3.8. Procesul mitozei așa cum apare el în celulele umane. Cromatidele apar în profază, apoi se aliniază la centru în metafază. Un set de 46 de cromozomi migrează spre fiecare celulă fiică nou formată în anafază, iar împărțirea celulei în telofază completează procesul.
CUM SE CITEȘTE FIGURA: În anafază migrează 8 cromozomi, 4 spre fiecare pol, față de 4 pe placa ecuatorială în metafază: celula-model are 4 cromozomi, nu 46.
Centriolii există înainte ca mitoza să înceapă: în interfază sunt deja o pereche și stau în citoplasmă.
În profaza timpurie perechea de centrioli s-a despărțit și la fiecare pol rămâne câte un singur centriol.
În profaza timpurie învelișul nuclear și nucleolul sunt încă prezente, iar filamentele fusului sunt deja întinse de la un pol la altul, pe dinafara nucleului.
În profaza timpurie materialul nuclear e o încâlceală de filamente în care cromozomii nu se pot deosebi unul de altul; devin numărabili abia în profaza târzie, ca structuri distincte în formă de X.
În profaza târzie învelișul nuclear și nucleolul au dispărut, iar cromozomii sunt împrăștiați în interiorul fusului, la niveluri diferite.
Placa ecuatorială e perpendiculară pe axul care unește cei doi poli, iar cromozomii stau în planul ei, cu centromerul pe placă și cu brațele întinse în același plan.
Celula e rotundă în interfază și devine alungită pe axul fusului, din profaza timpurie.
În anafază fiecare grup de patru cromozomi în „V” are vârful îndreptat spre polul către care merge, iar între cele două grupuri rămâne o zonă goală, la nivelul fostei plăci.
În telofază fiecare celulă fiică are deja nucleu refăcut, cu înveliș nuclear dublu și cu nucleol, deși citoplasma nu e încă împărțită.
În telofază fiecare celulă fiică are din nou o pereche de centrioli, la polul cel mai depărtat de zona de strangulare.
Filamentele fusului nu au dispărut în telofază: ele traversează încă gâtuitura dintre cele două celule fiice, unde se petrece citokineza.
Citokineza
Citokineza este procesul prin care citoplasma se divide și se formează două celule separate. În celulele umane, citokineza începe prin formarea unui șanț de clivare la nivelul plăcii ecuatoriale. Membrana celulară strangulează citoplasma și astfel se formează cele două celule fiice. Acest proces se mai numește și clivaj celular. Microfilamentele se contractă în timpul clivajului celular și participă la divizarea celulei în două celule fiice.
Mitoza și citokineza permit organismului să crească prin formarea de noi celule. De asemenea, aceste procese înlocuiesc celulele îmbătrânite sau deteriorate. Deoarece creșterea și repararea sunt procese complexe, controlul mitozei este esențial, astfel încât aceasta să se producă doar când este nevoie. Dacă se pierde controlul asupra mitozei, de obicei din cauza unei mutații ADN, poate apărea cancerul. Cancerul constă în mitoze necontrolate și răspândirea celulelor canceroase prin organism. De obicei, celulele canceroase își folosesc toate resursele pentru a se înmulți prin mitoze și, astfel, ele nu mai funcționează normal.
Sinteza proteică
Proteinele sunt compuși organici folosiți ca enzime, precum și ca materiale de structură în celulele corpului. Multe proteine sunt reținute intracelular pentru a fi folosite ca material structural. Proteinele apar în structura microtubulilor și a microfilamentelor, precum și în alte părți ale citoscheletului, și se găsesc în membrana plasmatică și în alte membrane intracelulare, ca de exemplu reticulul endoplasmatic. În plus, multe proteine specializate din organismul uman sunt exportate spre a fi utilizate în diverse activități extracelulare. De exemplu, anumite proteine alcătuiesc hormoni ca insulina, ligamentele și tendoanele articulațiilor, dar și mare parte din păr, piele și unghii.
Cea mai importantă componentă structurală a unei proteine este secvența în care sunt legați aminoacizii. Această secvență este determinată de codul genetic din ADN. Codul genetic constă în ordinea bazelor azotate din ADN. Pentru ca sinteza proteică să aibă loc, trebuie să fie prezente câteva materiale esențiale: o rezervă de 20 de aminoacizi ce compun majoritatea proteinelor, enzime, ADN și ARN (acid ribonucleic).
ARN-ul transportă instrucțiuni de la ADN-ul nuclear în citoplasmă, unde se sintetizează proteinele. ARN-ul este similar ADN-ului, cu două excepții: ARN-ul conține glucida riboză în loc de dezoxiriboză, iar nucleotidele ARN conțin baza azotată uracil în loc de timină.
Tipuri de ARN
Există patru tipuri de ARN, cu funcții diferite în sinteza proteică:
ARN-ul ribozomal (ARNr) este parte a ribozomilor. Ribozomii sunt particule citoplasmatice de ARN și proteine care leagă între ei aminoacizi pentru a forma proteine. În celulele umane, ribozomii se găsesc liberi în citoplasmă, dar și atașați membranelor reticulului endoplasmatic rugos.
ARN-ul de transfer (ARNt) se găsește liber în citoplasma celulelor și transportă aminoacizii la ribozomi în timpul sintezei proteice.
ARN-ul mesager (ARNm) primește codul genetic al ADN-ului și îl transportă în citoplasmă. Informația genetică este astfel transferată din molecula de ADN pe cea de ARNm, iar ARNm folosește informația pentru a sintetiza o proteină.
ARN-ul de reglare controlează expresia genică și sinteza proteică prin metode care încă se află în stadiu de cercetare.
Transcripția
O primă etapă a sintezei proteice este transcripția. În acest proces, o catenă de ARNm este sintetizată pe baza complementarității bazelor azotate din ADN. Procesul începe când enzima ARN-polimeraza se leagă de una dintre moleculele ADN ale dublului helix (cealaltă catenă rămâne dormantă) la locul unde gena va fi exprimată și se deplasează de-a lungul catenei de ADN, citind nucleotidele una câte una. Enzimele selectează nucleotidele disponibile cu baze complementare și le dispun astfel încât să formeze o moleculă de ARNm conform principiului complementarității bazelor azotate.
De exemplu, dacă în ADN există citozină, în ARN este inserată o moleculă de guanină și viceversa. Dacă în ADN este o moleculă de timină, în ARN va fi plasată o adenină, iar dacă în ADN este o adenină, atunci în ARN se va insera o moleculă de uracil. Lanțul de ARNm se extinde până când se primește un semnal de terminare a procesului.
Nucleotidele catenei de ARNm se citesc în grupe de câte trei, numite codoni. De exemplu un codon poate fi CGA (citozină-guanină-adenină) sau CUC sau AAA sau orice combinație a celor 4 nucleotide. Când sinteza ARNm este completă, molecula ARNm trece printr-un por al membranei nucleare și ajunge în citoplasmă, la ribozomi. Între timp, molecula de ADN se răsucește la loc pentru a forma din nou un dublu helix.
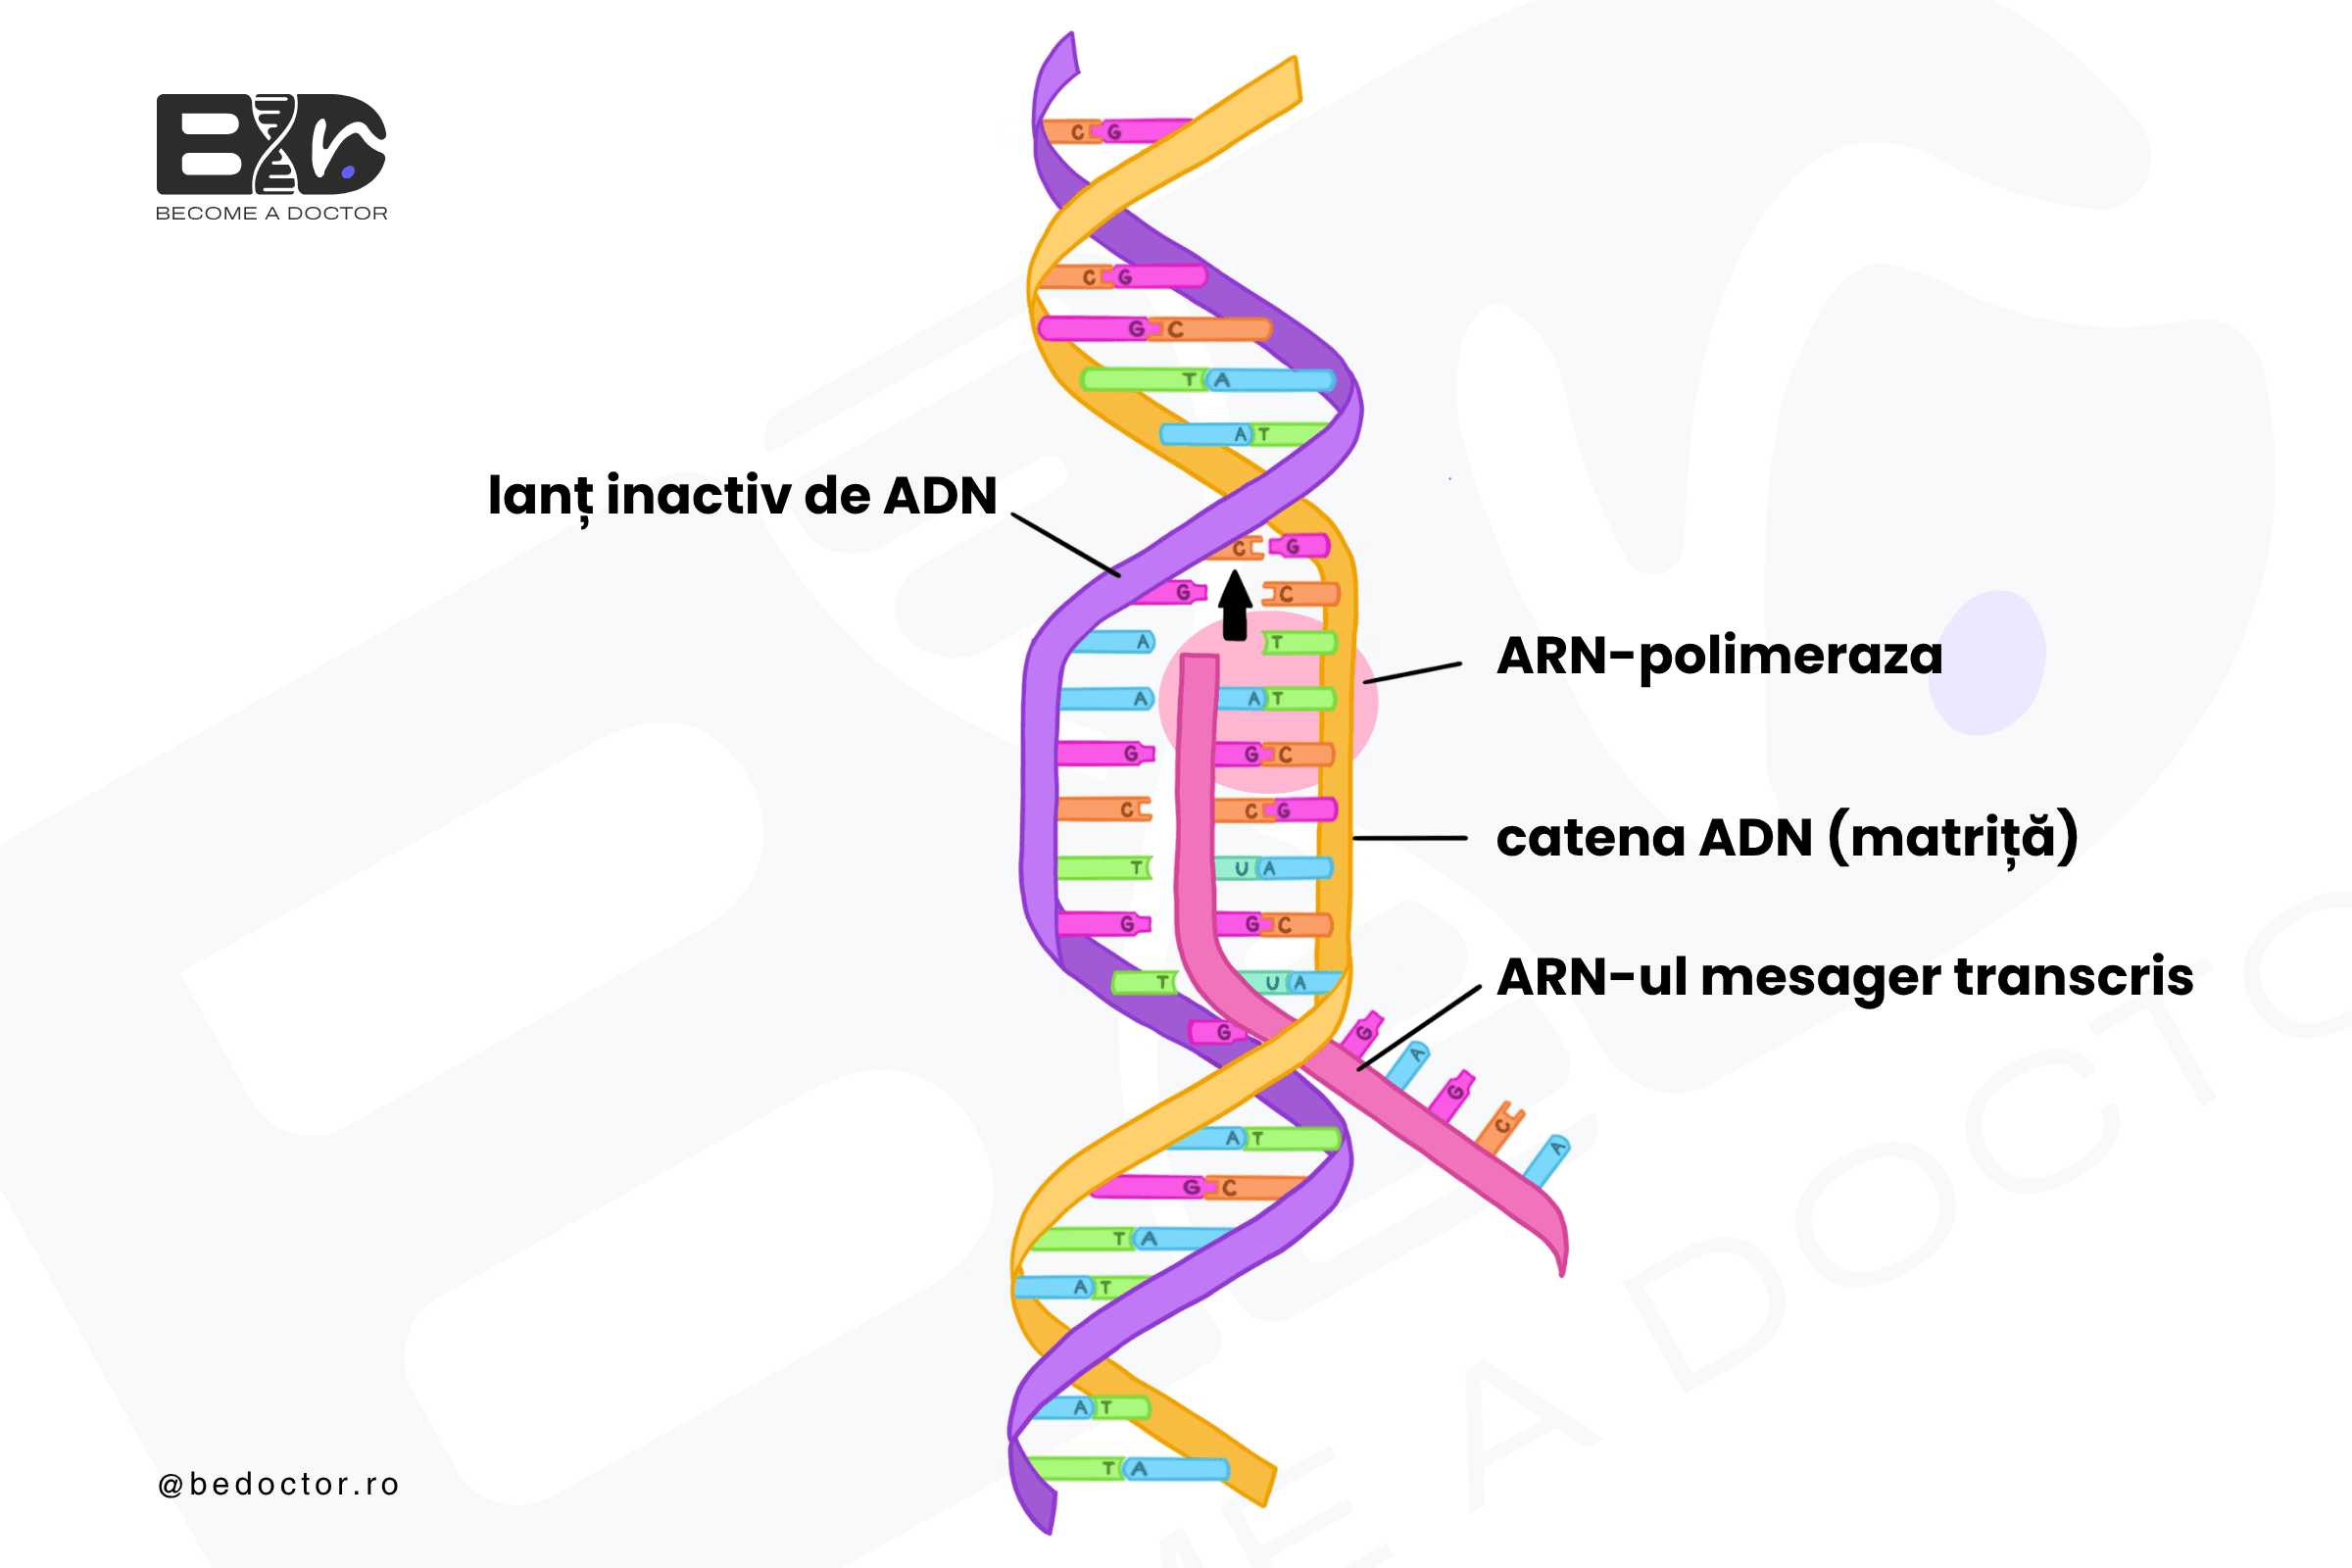
Figura nr. 3.9. Transcripția în procesul sintezei proteice. O catenă de ARNm se formează conform secvenței de baze complementare dintr-o catenă de ADN, iar apoi molecula ARNm transportă mesajul genetic în citoplasmă pentru sinteza proteică.
CUM SE CITEȘTE FIGURA: Polimeraza încalecă numai catena matriță; catena inactivă trece pe dinafara enzimei.
Enzima înaintează de-a lungul ADN-ului, iar ARNm deja sintetizat rămâne în urma ei.
Pe catena inactivă nu se construiește nicio moleculă: pe toată porțiunea deschisă, bazele ei rămân neîmperecheate
Dincolo de zona deschisă, cele două catene sunt din nou răsucite în dublu helix.
Capătul 5′ al ARNm e cel îndepărtat de polimerază și cel cu care ARNm pleacă spre citoplasmă.
ARNm e o catenă simplă, spre deosebire de ADN, care are două catene cu bazele în perechi; în porțiunile de ADN rămase închise sunt numai perechile A-T și C-G.
Translația
Translația este un proces prin care codul genetic este „decodificat” într-o secvență de aminoacizi din proteină. Procesul începe cu atașarea moleculei de ARNm la ribozom. Între timp, moleculele ARNt se atașează de aminoacizii specifici pe care îi transportă la ribozomi, pentru a întâlni ARNm.
După ce ajunge la ribozomi, molecula de ARNm își expune bazele în seturi de câte trei (codoni). O moleculă de ARNt are un anticodon care se împerechează cu bazele din codonul complementar. Când codonul moleculei de ARNm își întâlnește anticodonul de pe molecula de ARNt, bazele lor se împerechează. Apoi următorul codon al bazelor ARNm se împerechează cu anticodonul complementar din ARNt. Aminoacidul purtat de a doua moleculă de ARNt este poziționat lângă primul aminoacid, iar primul aminoacid este legat de al doilea cu ajutorul unei enzime ribozomale. Prima moleculă de ARNt revine apoi în citoplasmă pentru a căuta alt aminoacid.
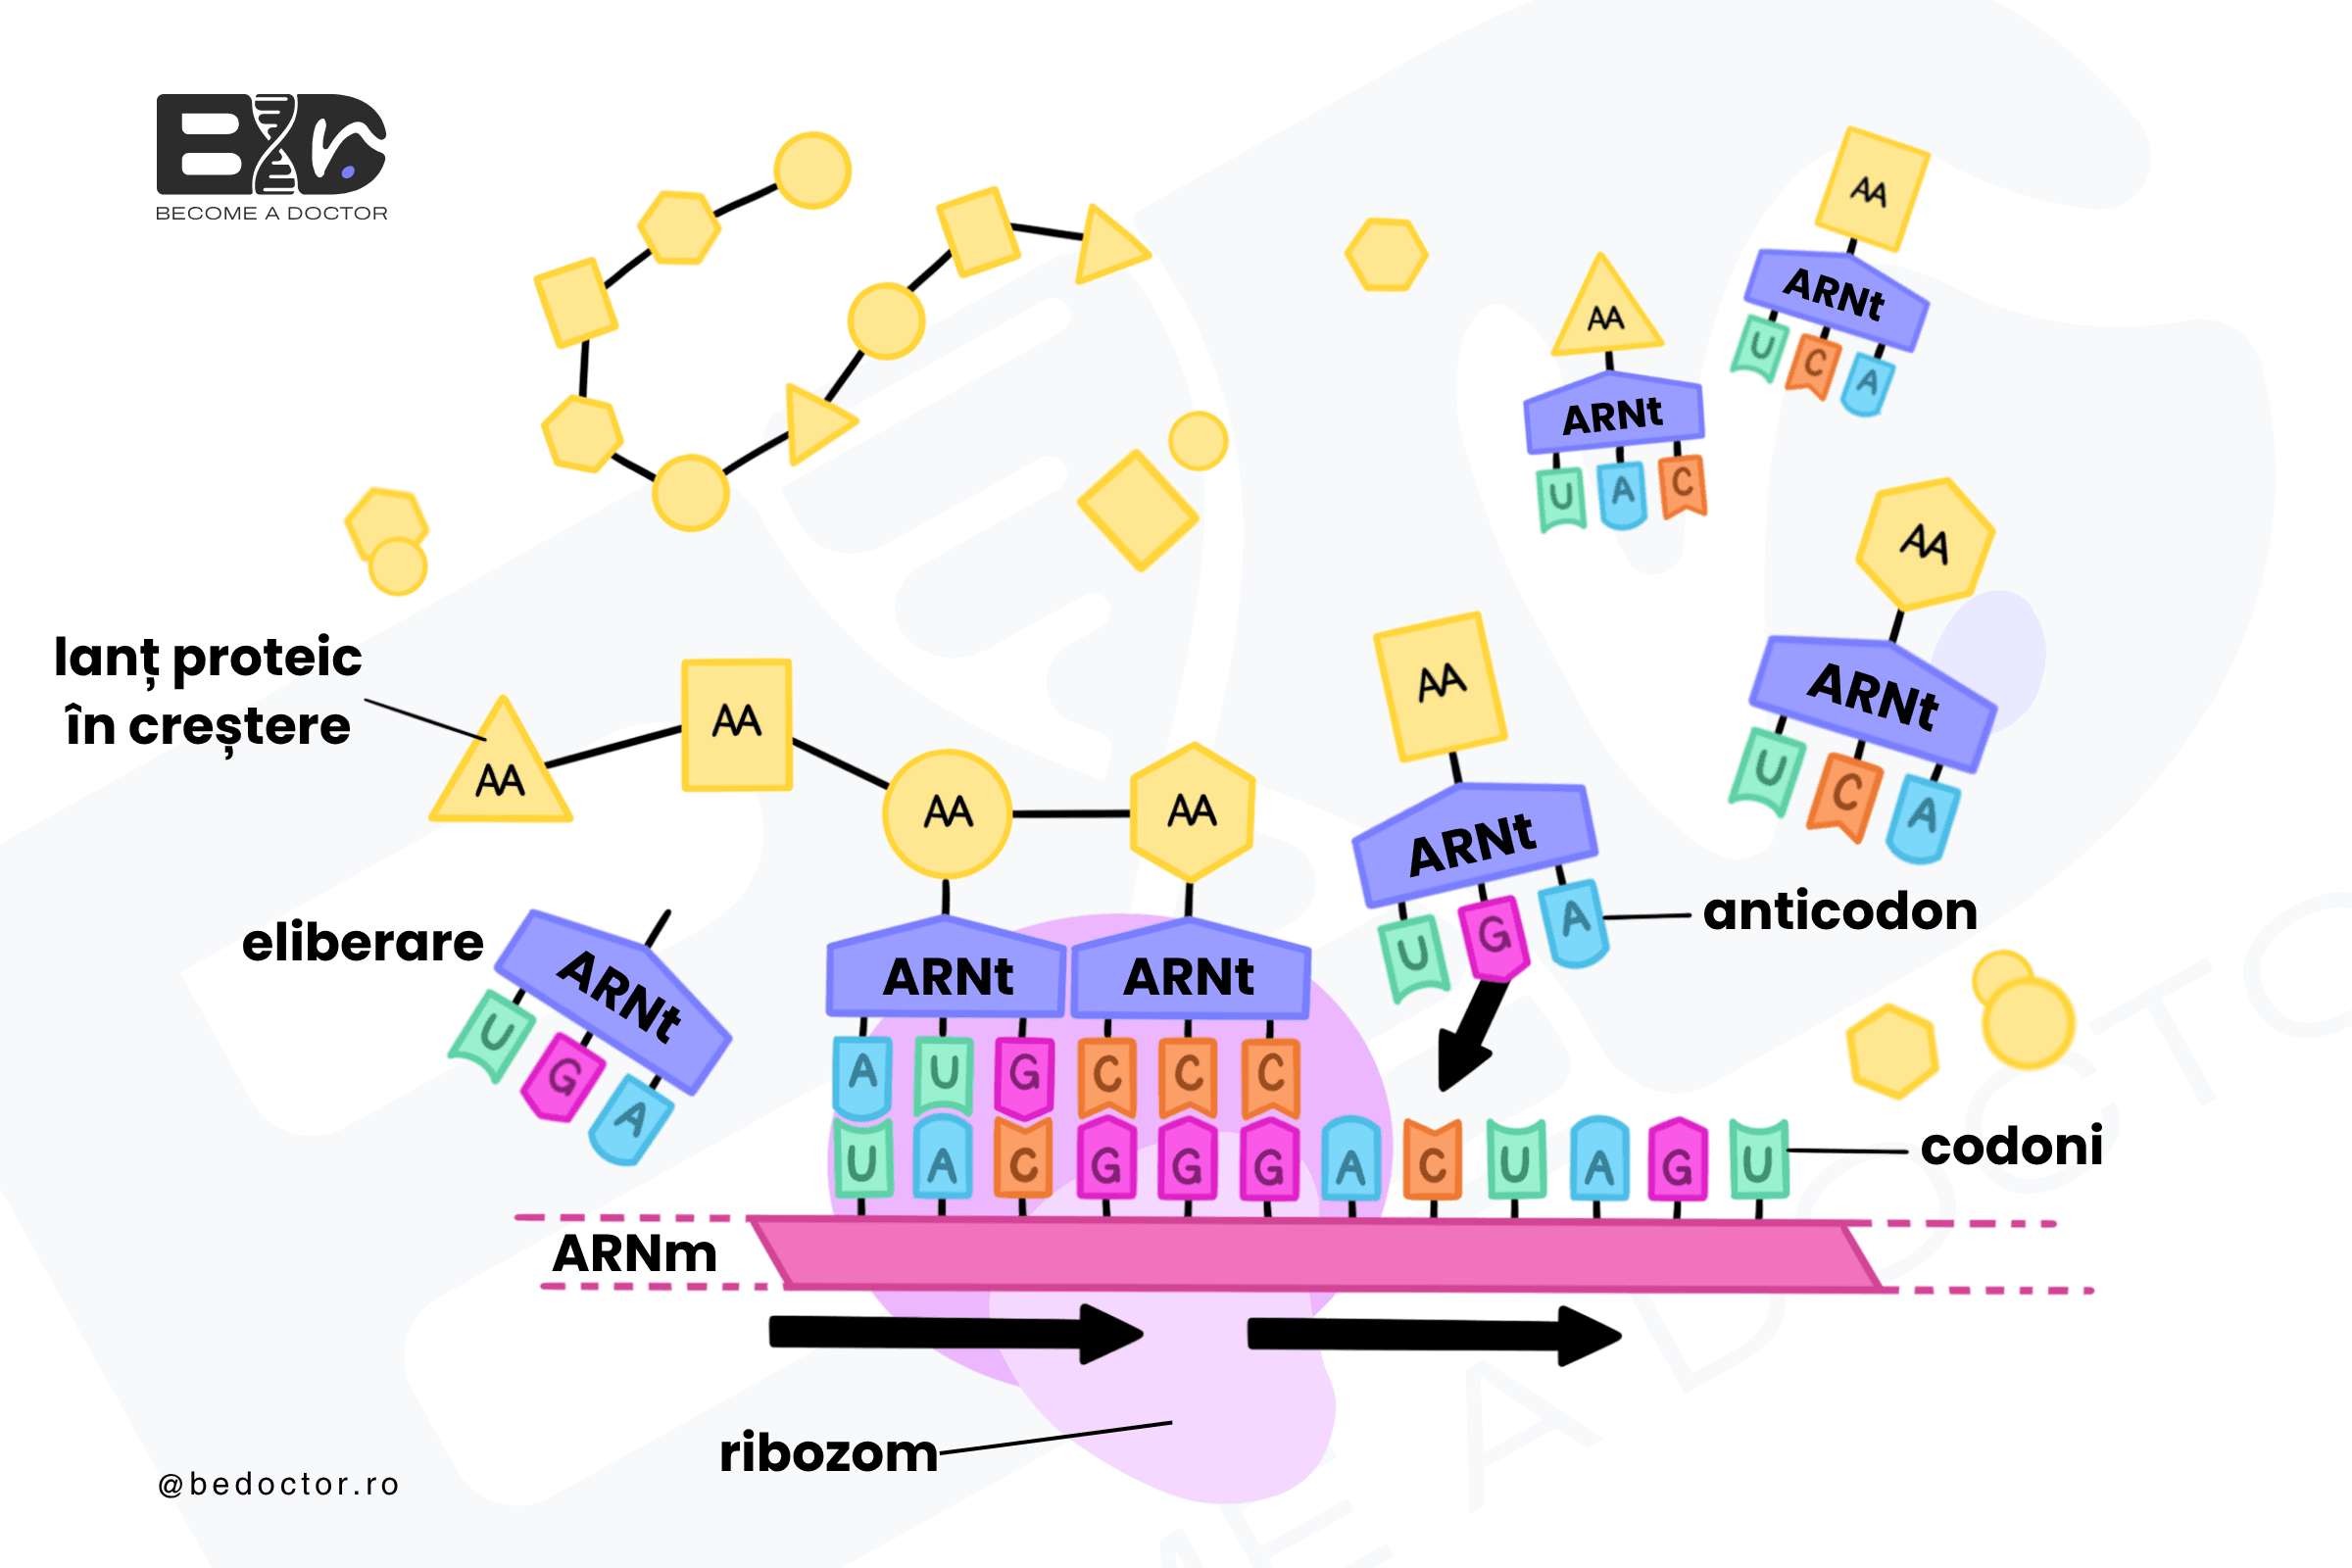
Figura nr. 3.10. Translația din sinteza proteică. O catenă de ARNm sosește la ribozom, unde întâlnește molecule de ARNt ce transportă aminoacizi; potrivirea codon-anticodon plasează aminoacizii într-o anumită poziție, iar aceștia sunt atașați lanțului proteic care crește.
CUM SE CITEȘTE FIGURA: Ribozomul prinde ARNm ca într-o menghină: o parte a lui stă pe o față a ARNm, alta pe cealaltă, iar ARNm trece prin șanțul dintre ele.
Ribozomul acoperă exact doi codoni deodată, iar pe ei sunt andocate două molecule de ARNt, alăturate.
Fiecare ARNt are trei baze la un capăt, anticodonul, și un singur aminoacid la capătul opus, nu lângă anticodon.
Codonul UAC de pe ARNm e citit de anticodonul AUG, iar codonul următor, GGG, de anticodonul CCC.
ARNt-ul care sosește vine dinspre codonii încă necitiți, iar cel eliberat pleacă pe unde ribozomul a trecut deja.
ARNt-ul care se eliberează pleacă gol, după ce a predat aminoacidul lanțului.
Legătura dintre ultimii doi aminoacizi ai lanțului e deja formată în timp ce amândoi sunt încă atașați fiecare de ARNt-ul lui.
Lanțul proteic iese din ribozom în partea opusă direcției lui de deplasare.
În citoplasmă sunt aminoacizi liberi, nelegați de niciun ARNt, și lanțuri proteice terminate, desprinse de ribozom și de orice ARNt.
După ce primul aminoacid este plasat în continuarea celui de-al doilea aminoacid și primul ARNt se îndepărtează, ribozomul se deplasează pe ARNm cu un codon. Un al treilea ARNt cu aminoacidul său leagă următorul codon. Ribozomul deplasează peptidul alcătuit din primii doi aminoacizi pentru a putea atașa un al treilea aminoacid, adus de o altă moleculă de ARNt. Ulterior, al doilea ARNt pleacă în căutarea unui alt aminoacid, iar ribozomul se deplasează pe ARNm cu încă un codon. Acest proces continuă, adăugând lanțului peptidic câte un singur aminoacid până se întâlnește un codon stop. Există trei codoni stop, care nu codifică aminoacizi; în schimb, aceștia anunță ribozomul să nu mai adauge aminoacizi când proteina este completă.
Odată sintetizată, proteina este îndepărtată din ribozom pentru a fi procesată în continuare: ea poate fi modificată în aparatul Golgi și depozitată în veziculele secretoare înainte de a fi eliberată de către celulă, poate fi trimisă lizozomilor pentru a servi ca enzimă digestivă sau poate fi folosită de celulă ca și component structural celular. Molecula de ARNm este degradată, iar nucleotidele sale se întorc în nucleu. Moleculele de ARNt așteaptă în citoplasmă să se unească cu noi molecule de aminoacizi, iar ribozomii anticipează sosirea unei molecule de ARNm pentru a sintetiza o nouă proteină.
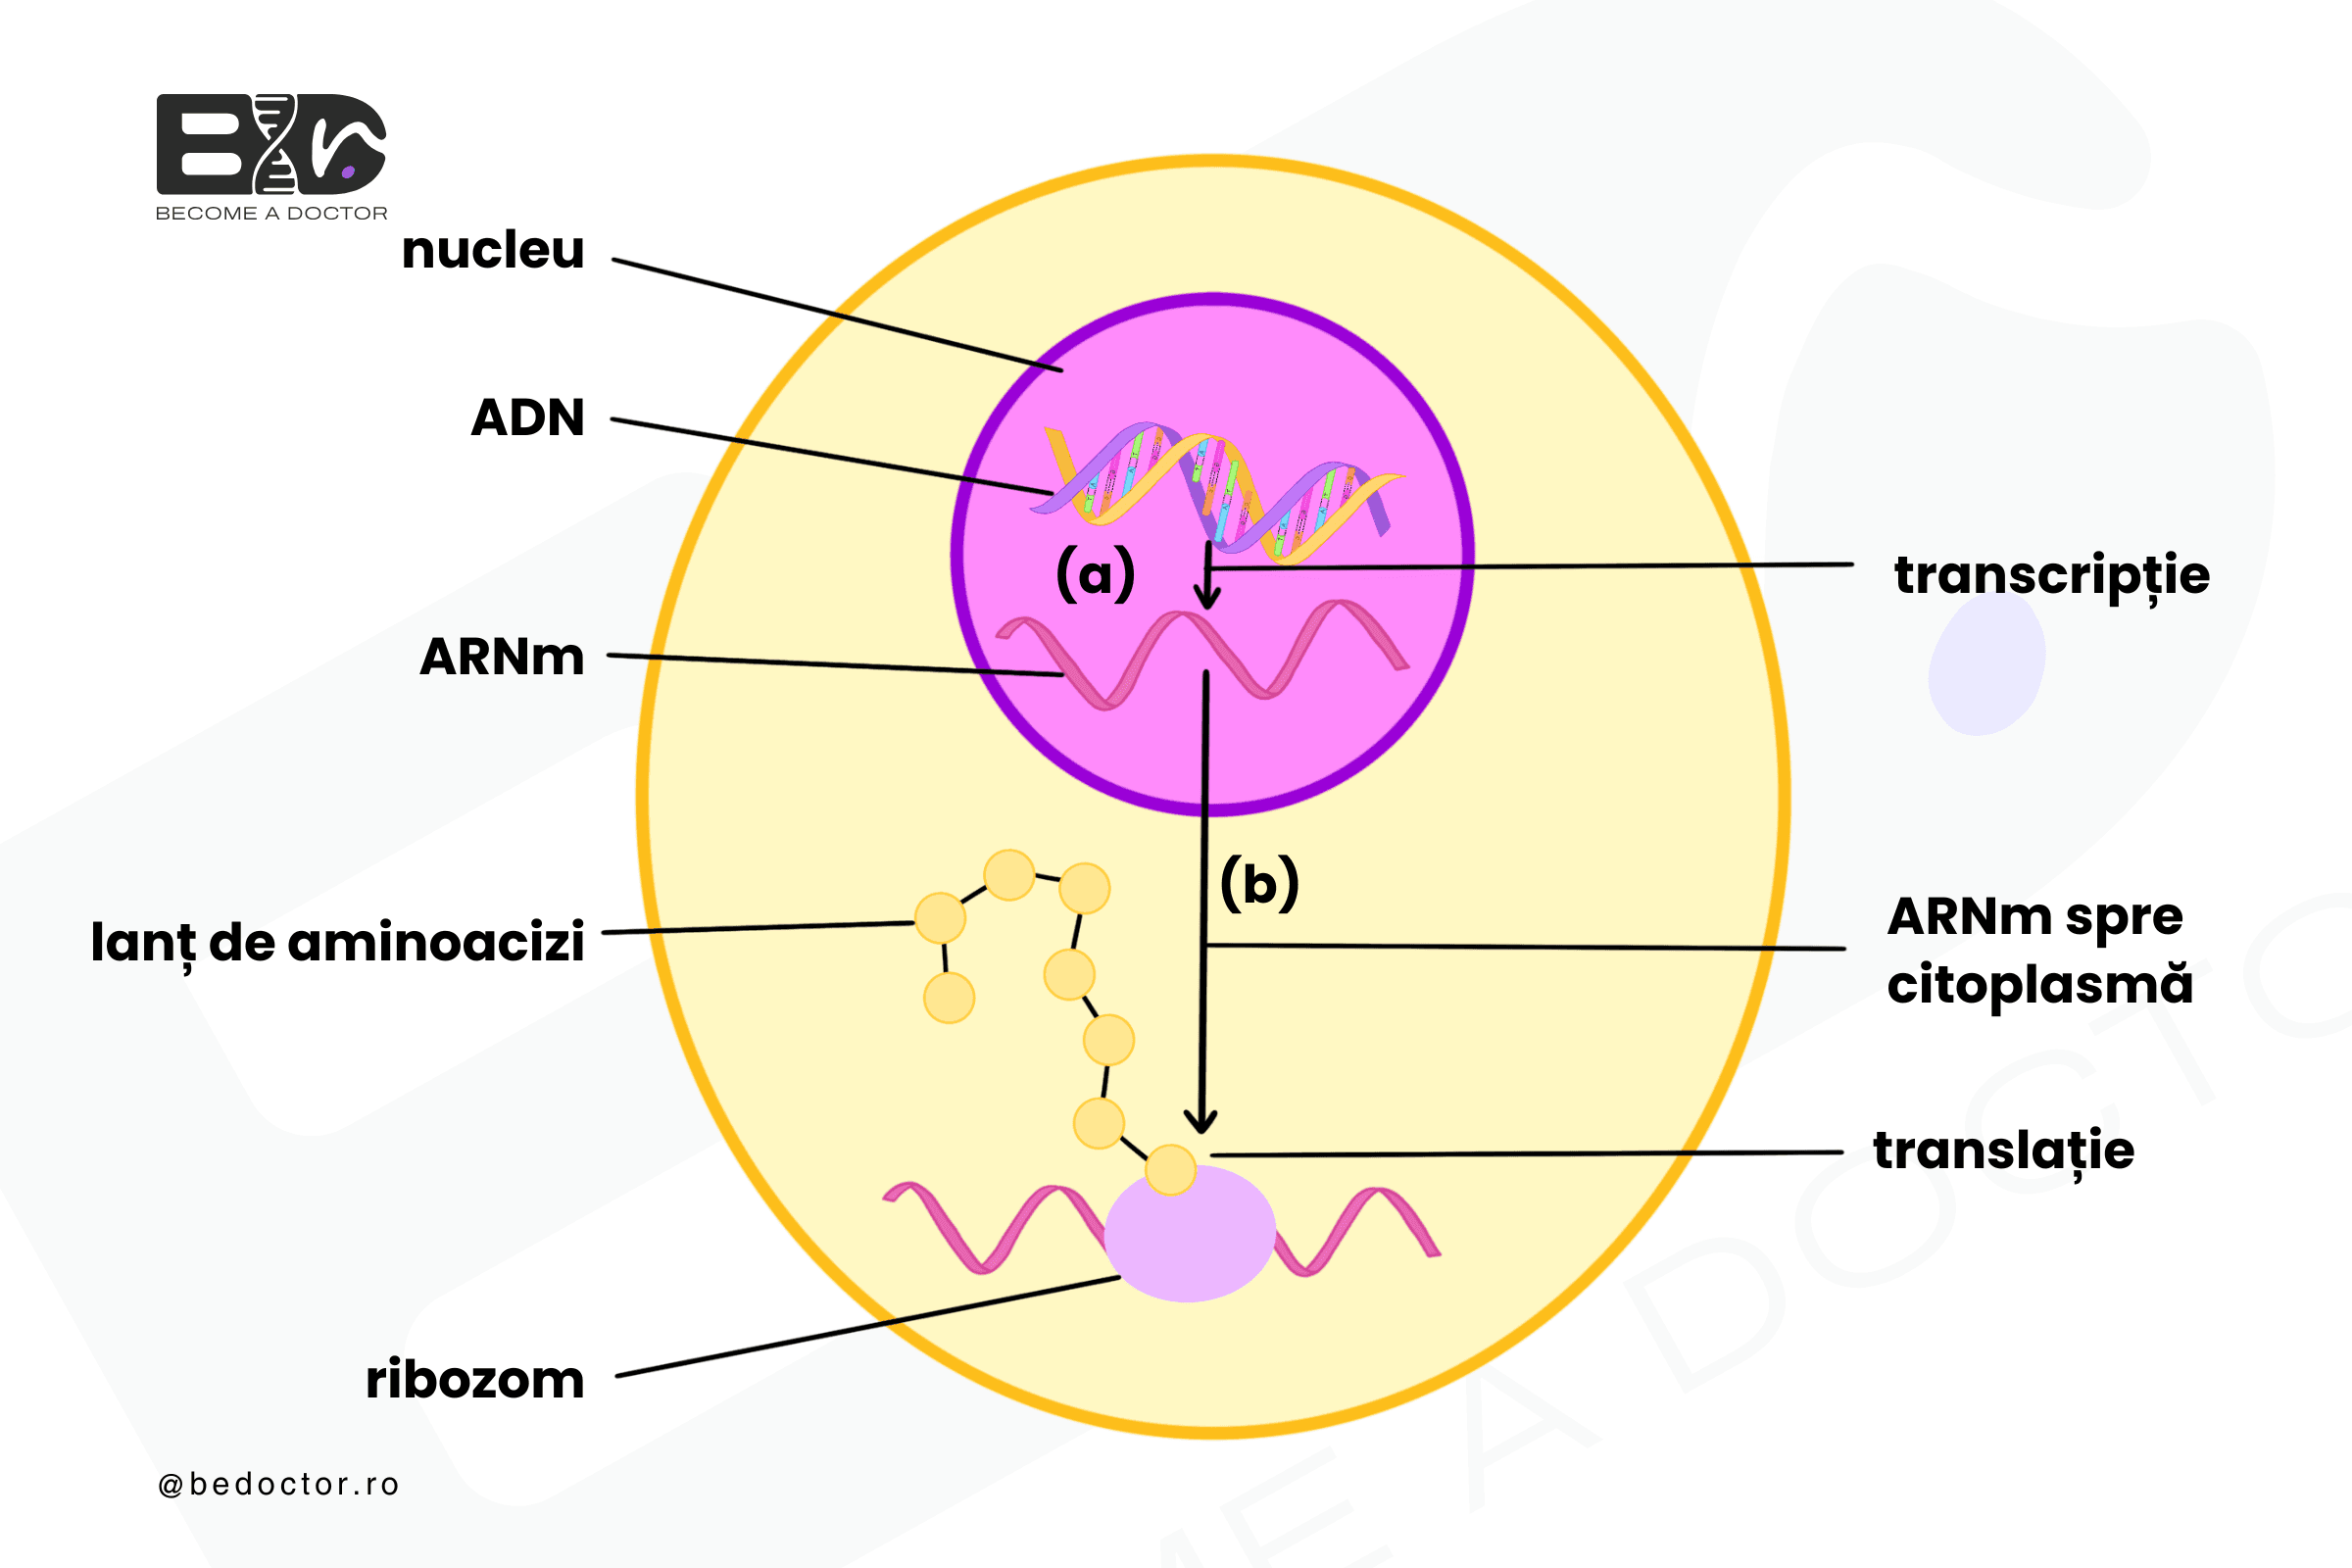
Figura nr. 3.11. Prezentare generală a sintezei proteice: (a) transcripție în nucleu, (b) deplasarea ARNm în citoplasmă și (c) translația la ribozomul celulei.
CUM SE CITEȘTE FIGURA: Transcripția se petrece în nucleu, translația în citoplasmă, iar ARNm nu are nicio escală între ele: iese prin învelișul nuclear și ajunge direct la ribozom.
Ribozomul lucrează liber în citoplasmă, așezat pe ARNm; ribozomii pot fi și atașați de reticulul endoplasmatic rugos.
ARNm depășește ribozomul de ambele părți.
Lanțul de aminoacizi pornește din ribozom și se pliază pe măsură ce se lungește.
Controlul genetic
Expresia genică este reglată și controlată de celulă, deoarece ar fi neeconomic ca celula să producă în permanență toate tipurile de proteine. De exemplu, o anumită enzimă digestivă este produsă când se consumă un anumit tip de aliment. În plus, anumite tipuri de celule produc doar anumite tipuri de proteine. De exemplu, o celulă pancreatică produce hormonul insulină în cantitate mare, pe când o celulă cerebrală nu produce acest hormon.
Controlul expresiei genice apare la câteva niveluri în celulă. De exemplu, genele sunt ținute sub control în timpul mitozei, deoarece cromozomul este compactat și supraspiralizat, iar această supraspiralizare controlează accesul la gene.
Controlul genic poate apărea în timpul transcripției sau după aceasta. În transcripție, anumite segmente de ADN controlează activitatea genelor din apropiere, modificând transcripția genică. Mai mult, după ce transcripția a avut loc, molecula de ARNm se modifică pentru a regla activitatea genică. S-a descoperit, de exemplu, că molecula de ARNm conține mai multe secvențe intercalate, necodante, numite introni. Intronii nu par a deține nicio informație genetică legată de sinteza proteică, însă se găsesc în toate celulele umane. Intronii sunt îndepărtați când se produce molecula de ARNm final. Părțile care mai rămân din ARNm, numite exoni, sunt unite pentru a forma molecula finală de ARNm.
Exonii sunt regiunile funcționale din structura genelor folosite efectiv pentru codificarea proteinelor unei celule. Ei alcătuiesc circa 5% din totalul materialului genetic al unei celule umane și reprezintă partea exprimată a genomului uman. Prin îndepărtarea intronilor și păstrarea exonilor, celula modifică mesajul primit de la ADN și controlează expresia genică. De asemenea, și ARN-urile de reglare controlează expresia genică.