8
.
Țesutul muscular
30
mins
4 subcapitole
Anatomia mușchilor striați scheletici
Țesutul muscular este unul dintre cele patru țesuturi de bază. Se deosebește de celelalte prin capacitatea de a se contracta și de a efectua lucru mecanic. Unitatea structurală a țesutului muscular este celula musculară, care are o formă alungită și se mai numește fibră musculară. În anatomie, termenii de celulă musculară și fibră musculară sunt similari și interschimbabili.
Mușchii striați scheletici sunt inserați pe oase, iar unitatea mușchi-țesut osos asigură mișcările corpului. Mușchiul cardiac al inimii pompează sângele. Țesutul muscular neted intră în componența tubului digestiv, a tractului respirator și a vaselor de sânge. Deși au forme și funcții diferite, mușchii se clasifică în trei categorii: striați scheletici, netezi și de tip cardiac.
Mușchiul neted (nestriat) este alcătuit dintr-o masă de celule fusiforme contractile. Se găsește în peretele tubului digestiv, al uterului, în vasele de sânge și în anumite ducte. Mușchiul cardiac este alcătuit tot din celule, dar proteinele lui contractile au o organizare complexă față de cele din mușchiul neted. Celulele musculare cardiace prezintă conexiuni speciale în peretele inimii, prin joncțiuni de tip „gap” de la nivelul discurilor intercalare.
Caracteristică | Mușchiul striat scheletic | Mușchiul neted | Mușchiul cardiac |
|---|---|---|---|
Localizare | Atașat scheletului | Peretele intestinelor, vase sanguine etc. | Peretele inimii |
Tip de control | Voluntar | Involuntar | Involuntar |
Forma fibrelor | Alungite, cilindrice, cu capete rotunjite | Alungite, fusiforme, cu capete ascuțite | Alungite, cilindrice, ramificate |
Striații | Prezente | Absente | Prezente |
Număr de nuclei pe fibră | Mulți | Unul | Unul |
Poziția nucleilor în celulă | Periferici | Central | Central |
Viteza contracției | Cel mai rapid | Cel mai lent | Intermediar |
Capacitatea de a rămâne contractat | Cea mai mică | Cea mai mare | Intermediară |
Tabelul nr. 8.1. Comparație între cele trei tipuri de țesuturi musculare.
Cel de-al treilea tip de mușchi și totodată cel mai frecvent întâlnit este mușchiul scheletic. În mușchiul scheletic, fiecare celulă musculară este în realitate un set de zeci sau sute de celule fuzionate. Celulele rezultate sunt de obicei foarte lungi și se numesc tipic fibre musculare. Un număr mare din aceste fibre formează organul numit „mușchi”. Este tipul de mușchi la care ne referim când vorbim despre „mușchi” într-un context general.
Ce face mușchiul scheletic
Una dintre caracteristicile de bază ale mușchiului striat scheletic este capacitatea de a exercita forță asupra oaselor. Celulele musculare se contractă printr-un mecanism activ și se relaxează printr-un mecanism pasiv. Contracția apare doar în urma unei stimulări.
Ansamblul complex al locomoției cere ca două grupuri de mușchi să realizeze mișcări ale părților corpului în direcții opuse. Mușchii care acționează unul împotriva celuilalt se numesc mușchi antagoniști. La articulația genunchiului, gamba este flectată posterior de mușchii flexori și extinsă anterior de mușchii extensori. Prin contracție, mușchii mișcă părțile scheletului de care sunt atașați.
CAPCANĂ DE GRILĂ: Contracția e activă, relaxarea e pasivă - din punct de vedere mecanic. Din punct de vedere energetic însă, ambele sunt procese active, consumând ATP.
Învelișurile de țesut conjunctiv
Celulele țesutului muscular scheletic sunt separate și învelite în straturi de țesut conjunctiv. Endomisium învelește fiecare fibră musculară, perimisium învelește un pachet de fibre musculare, adică un fascicul, iar epimisium și fascia învelesc întreg mușchiul. Stratul extern al fasciei, fascia superficială, conține o cantitate mare de țesut adipos la persoanele obeze.
Porțiunea mușchiului care conține fibrele musculare se numește gaster (sau corp). Endomisium, perimisium, epimisium și fascia se continuă dincolo de corpul mușchiului și formează tendonul, care atașează mușchiul de os.
De la fibră la sarcomer
Mușchiul striat scheletic se află sub control voluntar; de regulă, el se contractă numai când este stimulat de un impuls nervos. Mușchiul scheletic este alcătuit din fascicule de fibre (celule) musculare. Fiecare fibră conține un set de 4-20 filamente filiforme numite miofibrile. Fiecare miofibrilă are 1-2 μ lățime și până la 100 μ lungime.
Miofibrilele se găsesc în citoplasma fibrei, numită și sarcoplasmă. În sarcoplasmă se află numeroase mitocondrii, care furnizează ATP ca sursă de energie pentru contracția miofibrilelor.
Miofibrilele sunt organizate de-a lungul axului lor longitudinal în unități mai mici, numite sarcomere, fiecare având aproximativ 2 μ lungime. Sarcomerele reprezintă unitatea funcțională a mușchiului striat scheletic, iar distribuția lor repetitivă îi conferă mușchiului aspectul striat caracteristic.
Benzile, liniile și zonele sarcomerului
Aspectul microscopic al sarcomerului arată prezența a două tipuri de miofilamente, așezate paralel între ele: filamente subțiri și filamente groase. Filamentele groase sunt compuse dintr-un tip de proteină numită miozină, iar filamentele subțiri sunt formate dintr-o proteină numită actină.
Linia Z este zona în care filamentele de actină din două sarcomere adiacente se întrepătrund. Două linii Z delimitează un sarcomer.
Banda I este o bandă largă și clară, împărțită în două jumătăți egale de linia Z.
Banda A este banda largă și densă din mijlocul sarcomerului, formată prin suprapunerea filamentelor de miozină, printre care se găsesc filamente de actină.
Zona H împarte banda A în două jumătăți egale și conține doar filamente de miozină, fără filamente de actină.
Repetiția benzilor A și I determină aspectul striat al miofibrilelor din mușchii striați. Filamentele subțiri sunt ancorate la nivelul liniei Z. În timpul contracției musculare, filamentele opuse de actină sunt trase de-a lungul filamentelor de miozină, astfel încât cele două seturi de filamente de actină sunt trase unul spre celălalt.
Figura nr. 8.1. Structura microscopică și electronomicroscopică a celulei musculare striate scheletice.
CUM SE CITEȘTE FIGURA: Subordonarea are cinci trepte: mușchi întreg, fascicul, fibră musculară, miofibrilă, filamente. Sarcomerul nu e o treaptă separată, ci un segment al miofibrilei.
Mușchiul nu se prinde direct de țesutul osos, ci prin periost: fibrele tendonului se răsfiră în evantai pe el.
Prima subdiviziune a mușchiului e fasciculul, nu fibra: în secțiune se văd fascicule poligonale, nu fibre izolate; osul, secționat transversal, e spongios în interior.
Ordinea învelișurilor, de la suprafață spre profunzime: fascia, epimisium, perimisium, endomisium, fibră musculară, straturi încastrate unul în altul.
Fascia și epimisiumul sunt două straturi distincte, nu două nume pentru același înveliș: fascia e o foaie separată, așezată peste epimisium.
Fibrele unui fascicul sunt poligonale și lipite una de alta; perimisiumul înconjoară grupul, endomisiumul o singură fibră.
Nucleii sunt periferici, nu centrali, și nu sunt aliniați între ei: ovale turtite care bombează la suprafața fibrei, imediat sub sarcolemă, la niveluri diferite de-a lungul ei.
Miofibrilele umplu toată secțiunea fibrei, iar fiecare miofibrilă e la rândul ei un mănunchi de filamente.
În secțiune transversală, filamentele apar ca puncte, nu ca linii.
Filamentele groase și cele subțiri alternează: fiecare filament gros are câte un filament subțire deasupra și dedesubt.
Punțile transversale aparțin filamentului gros (miozină); filamentul subțire (actină) nu are proeminențe.
Filamentul gros e bipolar: are o porțiune centrală netedă, fără punți, iar punțile își schimbă orientarea de o parte și de alta a ei, deci există numai pe cele două jumătăți laterale, adică numai acolo unde pot întâlni actina.
Filamentul gros nu atinge niciodată linia Z: banda A începe și se termină la capetele lui, deci banda A e exact lungimea filamentului gros.
Banda I e împărțită între două sarcomere: jumătatea ei dintr-un sarcomer ține de la linia Z până la marginea benzii A, iar banda I întreagă se obține alipind două jumătăți din sarcomere vecine.
Zona H stă în interiorul benzii A, nu între două benzi A.
Zona H e spațiul liber dintre capetele interioare ale celor două seturi opuse de filamente subțiri: filamentele groase o traversează, cele subțiri nu ajung în ea.
Linia Z e hotarul sarcomerului, nu mijlocul lui: sarcomerul se întinde de la o linie Z la cealaltă, iar mijlocul lui cade în zona H. Filamentele subțiri depășesc aici linia Z și continuă dincolo de ea, în sarcomerul vecin.
Ordinea completă de la o linie Z la cealaltă: linia Z, banda I (numai actină), suprapunere actină-miozină, zona H (numai miozină), a doua suprapunere, banda I, linia Z.
CAPCANĂ DE GRILĂ: Linia Z împarte în două banda I, nu banda A; ce împarte în două banda A este zona H.
Banda A e definită prin lungimea filamentului gros și conține și actină la capete; banda I e singura porțiune cu actină și fără miozină.
Fiziologia mușchilor striați scheletici
Mecanismul de glisare a filamentelor
Contracția fibrei musculare apare când filamentele subțiri sunt trase unul spre altul, crescând suprapunerea cu filamentele groase din fibra musculară.
Moleculele de miozină ale filamentelor groase sunt compuse din două lanțuri polipeptidice, fiecare având forma unei crose de golf, cu axele răsucite una în jurul celeilalte și cu capetele înclinate în lateral ca într-o balama. Fiecare filament de miozină este înconjurat de filamente subțiri de actină, astfel încât cele două capete ale miozinei și filamentele de actină să poată veni în contact între ele în timpul contracției.
În mecanismul de glisare a filamentelor, capetele miozinei au rol de punți între filamentele de actină și miozină. Aceste capete aplică un impuls puternic, asemănător cu cel al unei vâsle care împinge apa. Impulsul trage filamentele de actină înspre interior, către zona H, iar această alunecare scurtează sarcomerul. Când același proces se desfășoară simultan în milioane de sarcomere din mii de fibre musculare, mușchiul se scurtează și se contractă.
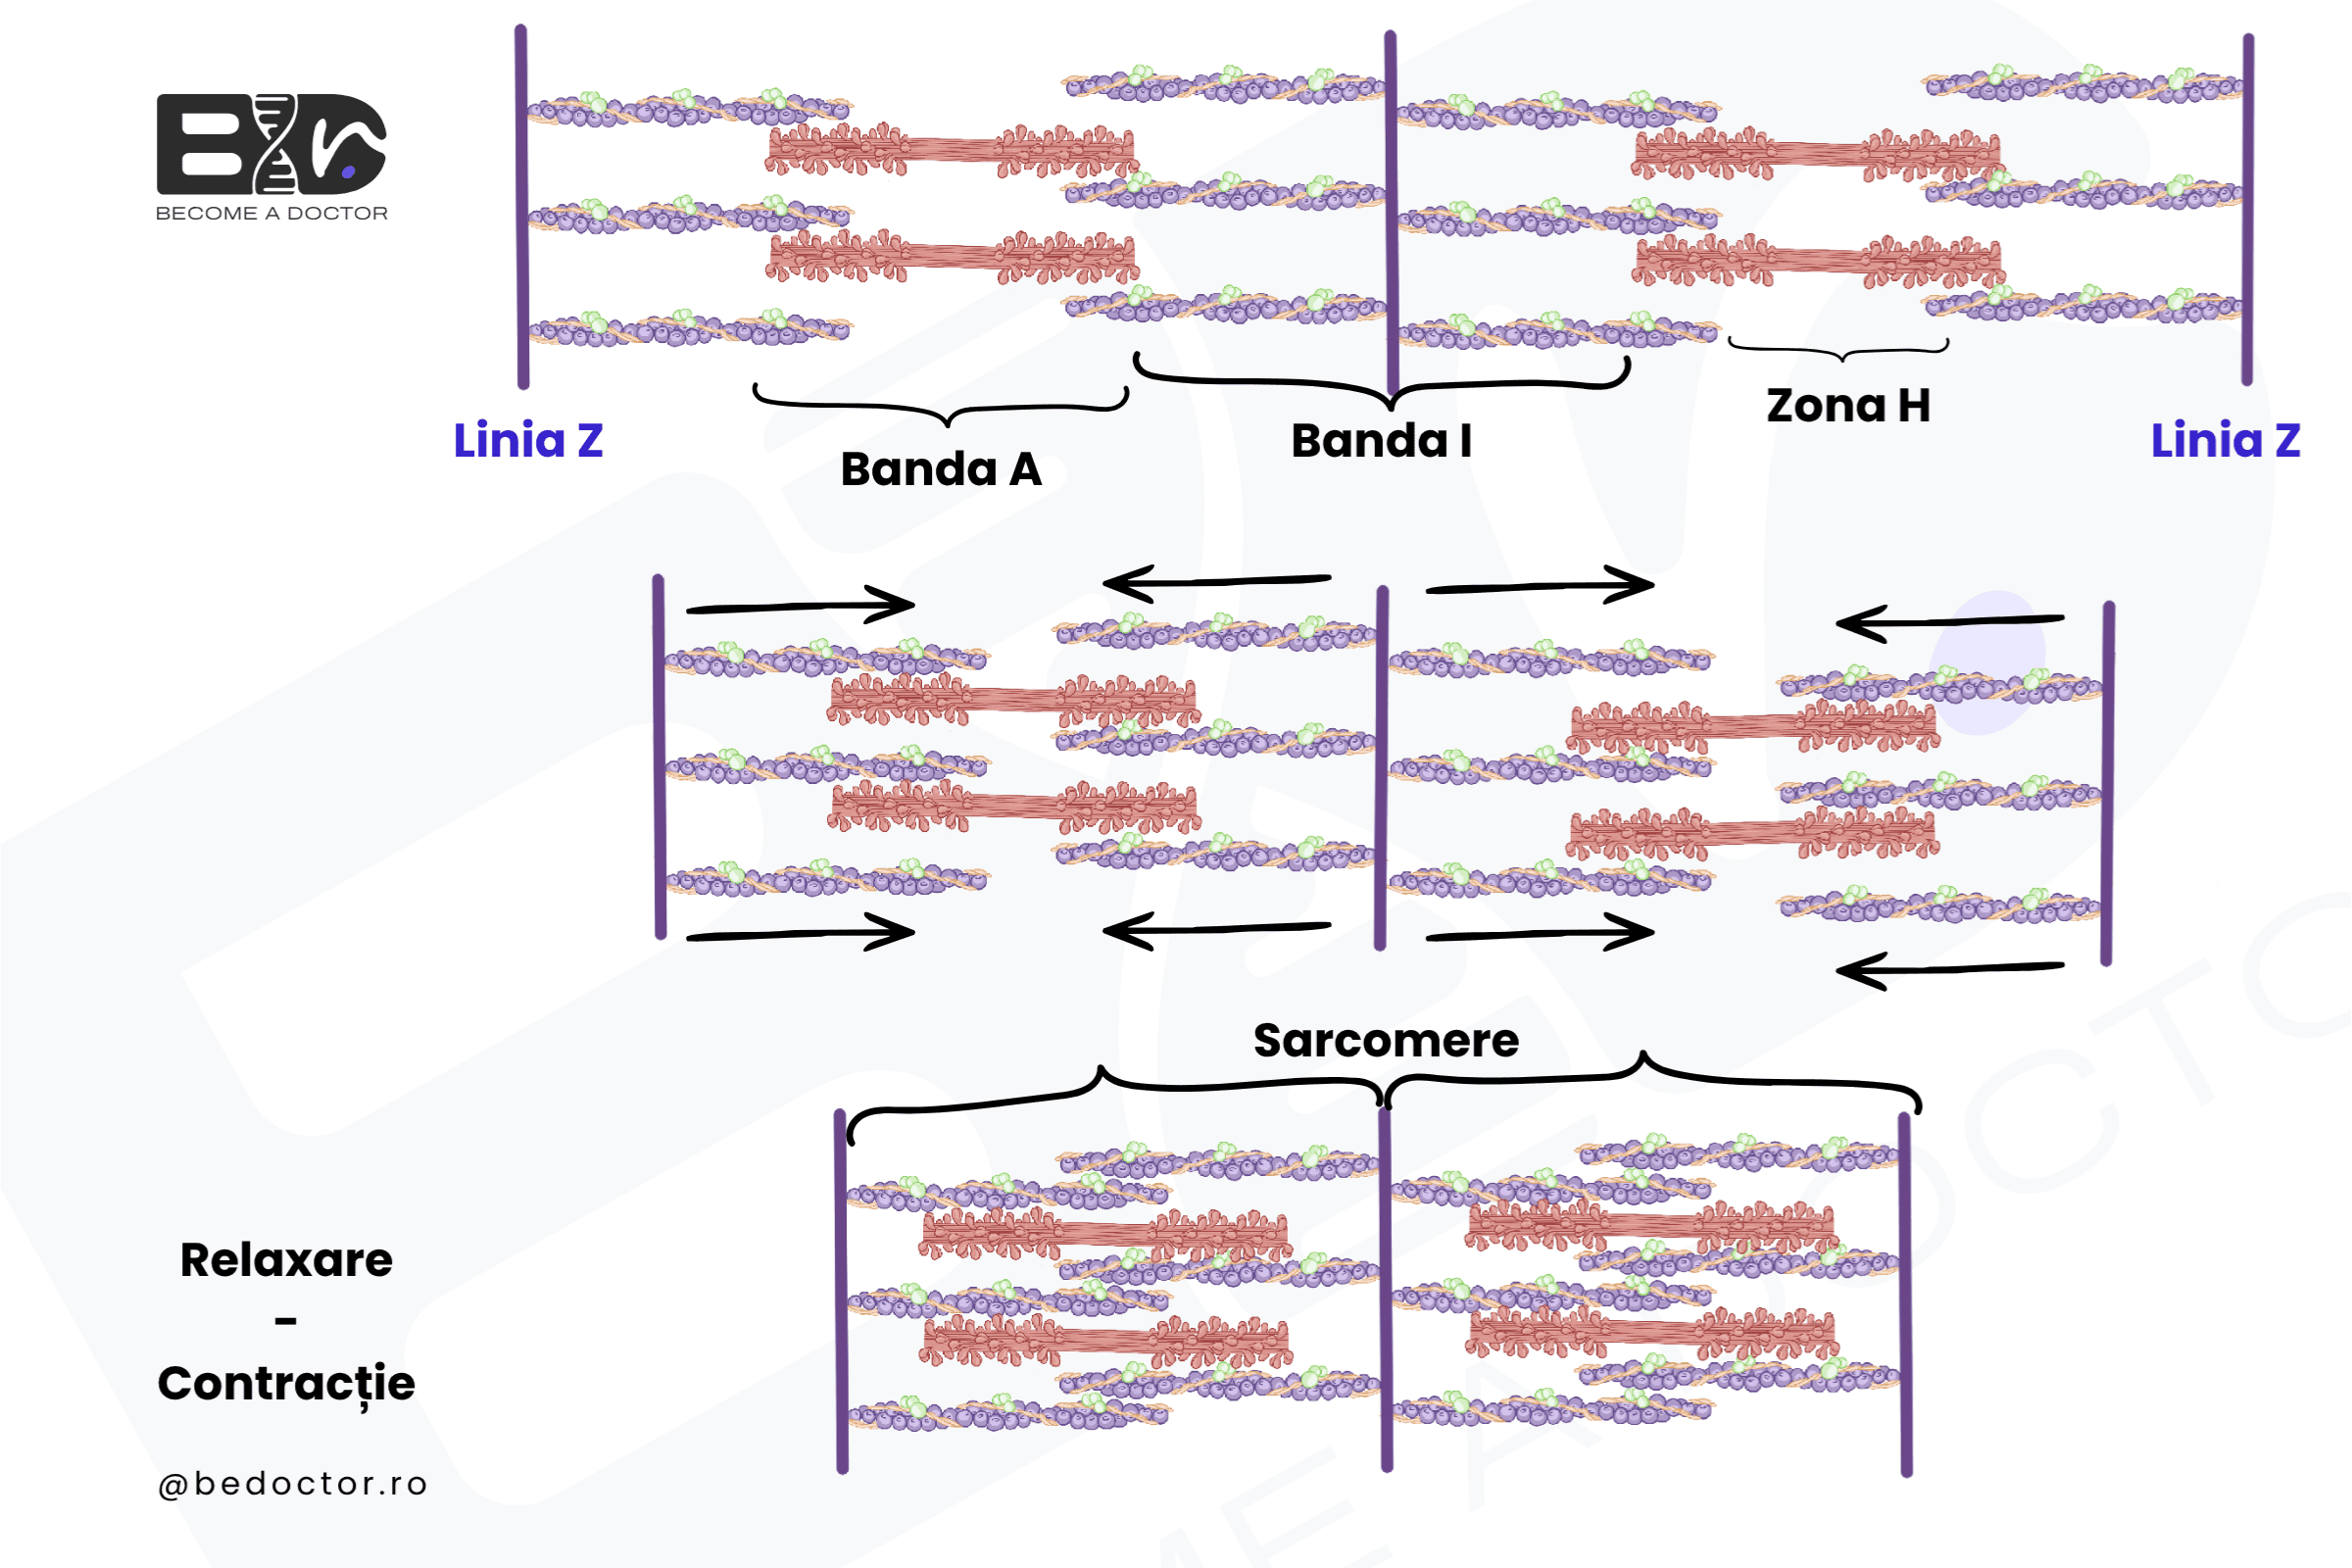
Figura nr. 8.2. Teoria mecanismului de glisare a filamentelor în timpul activității musculare, demonstrată pe două sarcomere.
CUM SE CITEȘTE FIGURA: Niciun filament nu se scurtează, se schimbă doar cât de mult se suprapun; sarcomerul scade la circa 60% din lungimea de repaus.
Banda A nu își schimbă lungimea în timpul contracției, fiindcă măsoară exact filamentul gros.
Zona H scade continuu și dispare.
Banda I scade, dar nu dispare complet nici la contracție maximală.
Banda A ocupă circa jumătate din sarcomer în relaxare și aproape 90% la contracție maximală.
La contracție maximală, cele două seturi opuse de filamente subțiri nu doar se ating, ci se depășesc unul pe celălalt și se suprapun pe o porțiune apreciabilă; stau la niveluri ușor diferite, ca să poată aluneca unul pe lângă celălalt.
Porțiunea centrală netedă a filamentului gros rămâne la mijlocul sarcomerului în toate cele trei stări.
Filamentele subțiri nu traversează linia Z aici: se opresc la ea, iar cele ale sarcomerului vecin se prind la un nivel ușor diferit, ceea ce dă întrepătrunderea de la linia Z.
Se mișcă doar actina, niciodată miozina.
Sensul e spre mijloc: în fiecare sarcomer cele două seturi de actină converg spre zona H.
Scurtarea e simetrică: cele două linii Z ale fiecărui sarcomer se apropie la fel de mult de mijlocul lui.
Pe măsură ce alunecarea avansează, sarcomerele ajung la dimensiunea lor minimă: zona H dispare, iar banda I își reduce foarte mult dimensiunile. La contracție maximală, filamentele de actină opuse ajung suprapuse.
Ciclul punților de miozină
Punțile de miozină produc contracțiile fibrelor deoarece ele se comportă ca niște enzime. Enzimele desfac molecula de adenozin trifosfat (ATP) în adenozin difosfat (ADP) și un grup fosfat anorganic.
ATP-ul se leagă de receptorul enzimatic aflat pe capul miozinei.
Molecula de ATP este descompusă, iar ADP-ul și fosfatul rămân legate de capătul miozinei.
Energia eliberată prin descompunerea ATP-ului activează capul miozinic în poziție armată.
În această poziție, între capul miozinei și filamentul de actină se creează o legătură slabă, care determină eliberarea ADP-ului și a fosfatului.
Odată cu îndepărtarea acestor compuși, capul miozinei se leagă puternic de filamentul de actină.
Capul miozinei înaintează și asigură impulsul, care determină alunecarea filamentelor de actină de-a lungul celor de miozină.
Când o nouă moleculă de ATP se leagă de receptorul miozinic, actina este eliberată, iar ciclul se repetă dacă stimulul neuronal persistă.
Fără stimulare nervoasă, sarcomerele din fibra musculară se relaxează. Ciclul de glisare a filamentelor se produce rapid, la nivelul a milioane de capete de miozină, la fiecare capăt al sarcomerului, atâta timp cât ATP-ul este disponibil și poate furniza energie pentru contracție.
CAPCANĂ DE GRILĂ: ATP-ul se leagă înainte de armarea capului, iar noua moleculă de ATP e cea care desprinde capul de actină, nu cea care îl leagă. Legătura puternică apare după eliberarea ADP-ului și a fosfatului, nu înainte de ea.
Mușchiul roșu și mușchiul alb
În așa-numitele fibre musculare roșii există un număr foarte mare de molecule de mioglobină, de culoare roșiatică, unde se stochează oxigenul. În starea de relaxare sau de contracție lentă a mușchiului, ATP-ul este utilizat lent, iar celulele sunt capabile să genereze rapid ATP din oxigenul stocat în mioglobină, pentru respirație celulară. Aceste proprietăți permit mușchilor roșii să se contracte repetat și să reziste oboselii musculare. Mușchiul roșu este adesea numit mușchi lent sau mușchi oxidativ, datorită rezervei de oxigen stocată în mioglobină.
Un alt tip de mușchi este mușchiul alb. Acesta este numit uneori mușchi rapid sau mușchi glicolitic, datorită abundenței de glicogen. Mușchiul alb are puțină mioglobină sau chiar deloc și, de aceea, depozitul de oxigen este foarte redus. ATP-ul este utilizat rapid, dar nu poate fi înlocuit la fel de rapid, deoarece cantitatea de oxigen disponibilă pentru respirația celulară este foarte mică. Astfel, mușchiul alb prezintă rapid oboseală musculară, cu acumulare de acid lactic.
Inițierea contracției musculare
Filamentele subțiri de actină se prezintă sub forma a două lanțuri răsucite într-un helix. În șanțul acestui helix se găsesc moleculele unei proteine denumite tropomiozină. Când un mușchi este relaxat, tropomiozina împiedică legarea capetelor miozinei de actină, mascând locul în care legătura ar trebui să apară în mod normal.
O altă proteină, denumită troponină, se găsește la intervale regulate de-a lungul filamentelor de actină. Troponina se leagă atât de moleculele de tropomiozină, cât și de cele de actină, precum și de ionii de calciu.
Fibrele musculare se contractă atunci când primesc un impuls nervos. Neurotransmițătorul, respectiv acetilcolina, este eliberat la nivelul joncțiunii neuromusculare când impulsul nervos ajunge la aceasta. Joncțiunea neuromusculară este compusă dintr-o singură fibră musculară și terminația unei singure celule nervoase. Deși membranele celulei musculare și ale celei nervoase sunt foarte apropiate, ele nu se ating, rămânând separate printr-un spațiu plin cu lichid, numit fantă sinaptică. Neurotransmițătorii sunt eliberați în acest spațiu.
Impulsul este inițiat în celula musculară și apoi se propagă pe întreaga suprafață celulară, declanșând seria de evenimente din interiorul celulei musculare care va culmina cu contracția acesteia.
În toate celulele aflate în repaus, concentrația ionilor de sodiu este menținută scăzută prin transport activ. Când acetilcolina se leagă de receptorii de pe membrana celulară, numită și sarcolemă, ionul de sodiu pătrunde în interiorul celulei.
COMPLETARE: Transportul activ care ține sodiul scăzut în celulă este pompa de sodiu-potasiu.
Concentrația ionilor de calciu din citoplasma celulelor aflate în repaus este de asemenea foarte scăzută, deoarece calciul este în permanență pompat în afara celulei sau înspre interior, în reticulul endoplasmic neted specializat al celulei, numit și reticul sarcoplasmic. În interiorul fibrelor musculare există și un alt tip de rezervor de calciu, format dintr-un sistem de invaginări ale sarcolemei, denumit sistemul tubilor transversali sau tubii T. Tubii T sunt situați în dreptul joncțiunilor A-I și permit calciului să pătrundă din spațiul extracelular.
COMPLETARE: Cisternele terminale sunt părți ale reticulului sarcoplasmic, saci dilatați ai acestuia, lipiți de tubii T.
Influxul de ioni de sodiu produce o activitate electrică de-a lungul fibrei musculare, permițând tubilor T și reticulului sarcoplasmic să elibereze rapid ionii de calciu în interiorul sarcoplasmei. Ionii difuzează din depozite în sarcoplasmă, scăldând filamentele. Aici ionii de calciu se leagă de situsurile de la nivelul moleculelor de troponină, iar complexul își schimbă forma. Deoarece troponina este legată de tropomiozină, tropomiozina își schimbă poziția și eliberează locurile de cuplare ale actinei cu capetele miozinei. Astfel se declanșează un impuls puternic. Dacă se eliberează cantități mari de ioni de calciu, se pot forma mai multe legături cu troponina, ceea ce permite realizarea de contracții mai numeroase și mai puternice.
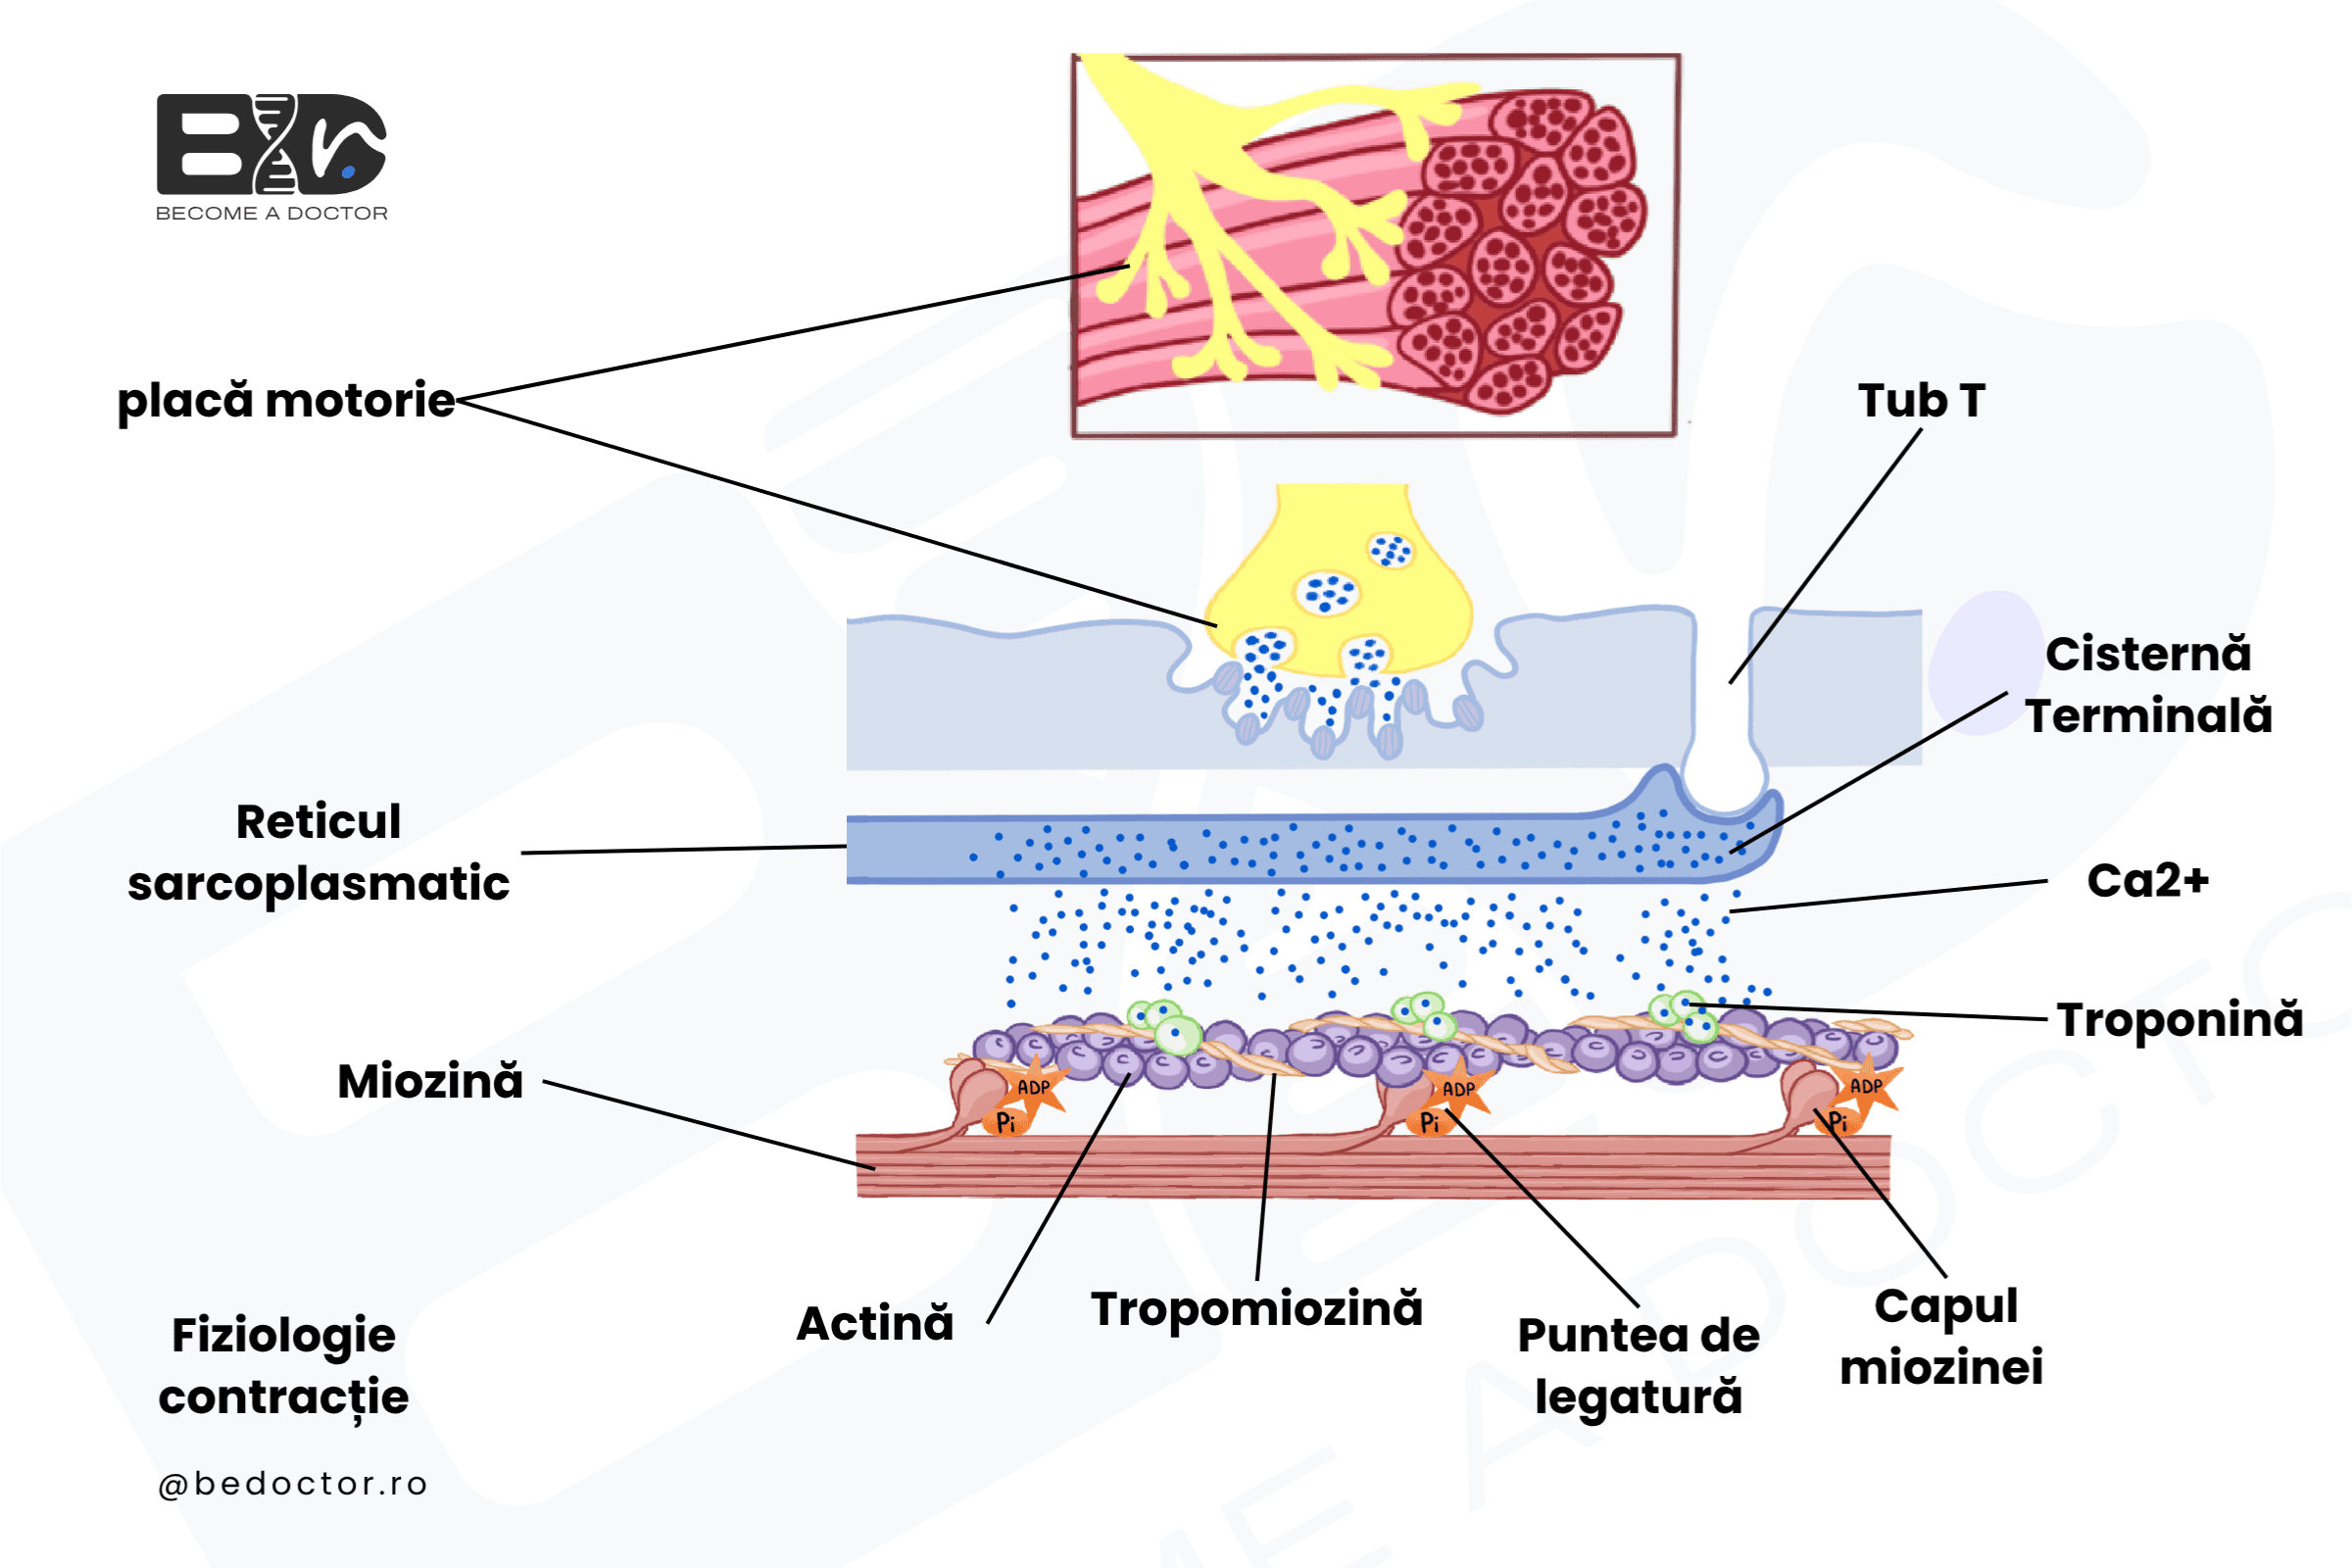
Figura nr. 8.3. Detalii ale contracției sarcomerului în fibra musculară.
CUM SE CITEȘTE FIGURA: Fibra e surprinsă în starea activată, de după fixarea calciului, în plină depolarizare, nu în repaus: locurile de legare de pe actină sunt descoperite, capetele miozinei le ating, iar semnele de sarcină arată polaritate inversată.
Depozitul de calciu e cisterna terminală: calciul apare numai în interiorul cisternelor terminale, nu în tubul care le unește și nu în lumenul tubului transversal.
Calciul merge din cisterna terminală direct la troponină, fără etapă intermediară.
Calciul se leagă de troponină, nu de actină și nu de tropomiozină: troponina e atașată pe tropomiozină, proeminentă în afara filamentului, la intervale regulate.
Reticulul dintre două tuburi T are formă de halteră: două cisterne terminale unite printr-un tub subțire, fiecare lipită de tubul T vecin.
Tubul transversal e o invaginare: se deschide la suprafața exterioară a fibrei și are capătul orb îndreptat spre interior, spre miofilamente.
În depolarizare sarcoplasma e pozitivă, iar exteriorul celulei și lumenul tubului T sunt negative: lumenul tubului T e continuu cu spațiul extracelular.
Locul de cuplare a ATP-ului e pe capul miozinei, iar locul de formare a punților de legătură pe actină: două situsuri, pe molecule diferite.
Filamentul gros e un mănunchi de mai multe molecule de miozină alăturate, nu una singură.
O moleculă de miozină are coada culcată în interiorul filamentului, apoi un gât care iese aproape în unghi drept și se termină cu un cap globular; capetele sunt îndreptate spre actină.
Tropomiozina e o panglică continuă, așezată în șanțul dintre cele două șiruri răsucite de actină.
CAPCANĂ DE GRILĂ: Tropomiozina se deplasează doar pentru că e legată de troponină, nu pentru că ar lega ea calciul. Variantele false pun calciul direct pe locul de cuplare al actinei sau îl leagă de tropomiozină.
Relaxarea
Un mușchi se relaxează când nu mai există impulsuri nervoase care să-l stimuleze în vederea contracției. Când impulsurile încetează, sarcolema și tubii T revin la starea de repaus. Eliberarea ionilor de calciu din reticulul sarcoplasmic se încheie, iar enzimele pompează calciul înapoi în cisternele terminale.
Odată cu retragerea calciului, troponina revine la configurația de repaus, iar tropomiozina acoperă din nou locurile de cuplare ale miozinei de pe filamentele de actină. Filamentele de actină glisează spre exterior, pentru ca sarcomerul să revină la lungimea inițială de repaus.
Contracția fibrei musculare | Relaxarea fibrei musculare |
|---|---|
1. Stimularea apare când acetilcolina este eliberată de un neuron motor | 1. Colinesteraza determină descompunerea acetilcolinei, ca atare membrana musculară nu mai este stimulată |
2. Acetilcolina traversează fanta sinaptică de la nivelul joncțiunii neuromusculare | 2. Ionii de calciu sunt transportați activ în interiorul tubilor T și al reticulului sarcoplasmic |
3. Membrana fibrei musculare este stimulată și impulsul se transmite în profunzimea fibrei prin intermediul tubilor T | 3. Punțile de legătură dintre filamentele de actină și miozină se rup |
4. Ionii de calciu difuzează din reticulul sarcoplasmic în sarcoplasmă și se leagă de moleculele de troponină | 4. Filamentele de actină și miozină glisează una față de cealaltă |
5. Moleculele de tropomiozină se deplasează și expun locurile de legare specifice de pe filamentele de actină | 5. Lungimea fibrei musculare se restabilește pe măsură ce aceasta se relaxează |
6. Se formează punți de legătură între filamentele de actină și miozină | 6. Moleculele de troponină și tropomiozină inhibă interacțiunea dintre filamentele de actină și miozină |
7. Filamentele de actină glisează spre interior, de-a lungul filamentelor de miozină | |
8. Fibra musculară se scurtează pe măsură ce se produce contracția |
Tabelul nr. 8.2. Evenimentele din timpul contracției și relaxării fibrei musculare.
ATP-ul este consumat atât în timpul contracției, cât și în timpul relaxării. În timpul relaxării, ATP-ul asigură energia pentru a pompa ionii de calciu în tubii T și în reticulul sarcoplasmic. Mușchii care nu se pot aproviziona cu ATP vor rămâne contractați. De exemplu, după moarte, celulele musculare rămân contractate, stare denumită rigor mortis: actina și miozina sunt blocate împreună în poziție de contracție. După câteva ore, mușchii se relaxează, pe măsură ce alte procese degenerative încep să domine.
Răspunsul gradual
Un aspect important al fibrei musculare individuale îl reprezintă răspunsul „tot sau nimic”. Aceasta înseamnă că o fibră se contractă numai după ce un impuls depășește o anumită intensitate prag și se răspândește apoi în întreaga celulă. Odată ce intensitatea prag a fost depășită, creșterea în continuare a intensității, a ratei și a duratei impulsului va produce o contracție doar cu puțin mai puternică. Cu alte cuvinte, fibra (celula) musculară se contractă fie complet, fie deloc.
Mușchiul, ca întreg, nu se supune legii „tot sau nimic”, ci răspunde în mod gradual la stimuli. Un răspuns gradual este un răspuns variabil, dependent de numărul de fibre musculare care se contractă într-un mușchi. În cazul în care un număr mare de neuroni conduc impulsuri la un mușchi, se vor contracta mai multe fibre musculare. Dacă sunt stimulate numai câteva fibre, contracția mușchiului va fi slabă.
Fiecare neuron se ramifică spre fibrele musculare ale mușchiului și, ca atare, un singur neuron poate stimula până la 100 de fibre musculare. Neuronul, împreună cu fibrele musculare pe care le stimulează, constituie o unitate motorie. Neuronii care conduc impulsuri către fibrele musculare se numesc neuroni motori, iar un neuron motor deservește un număr variabil de fibre musculare.
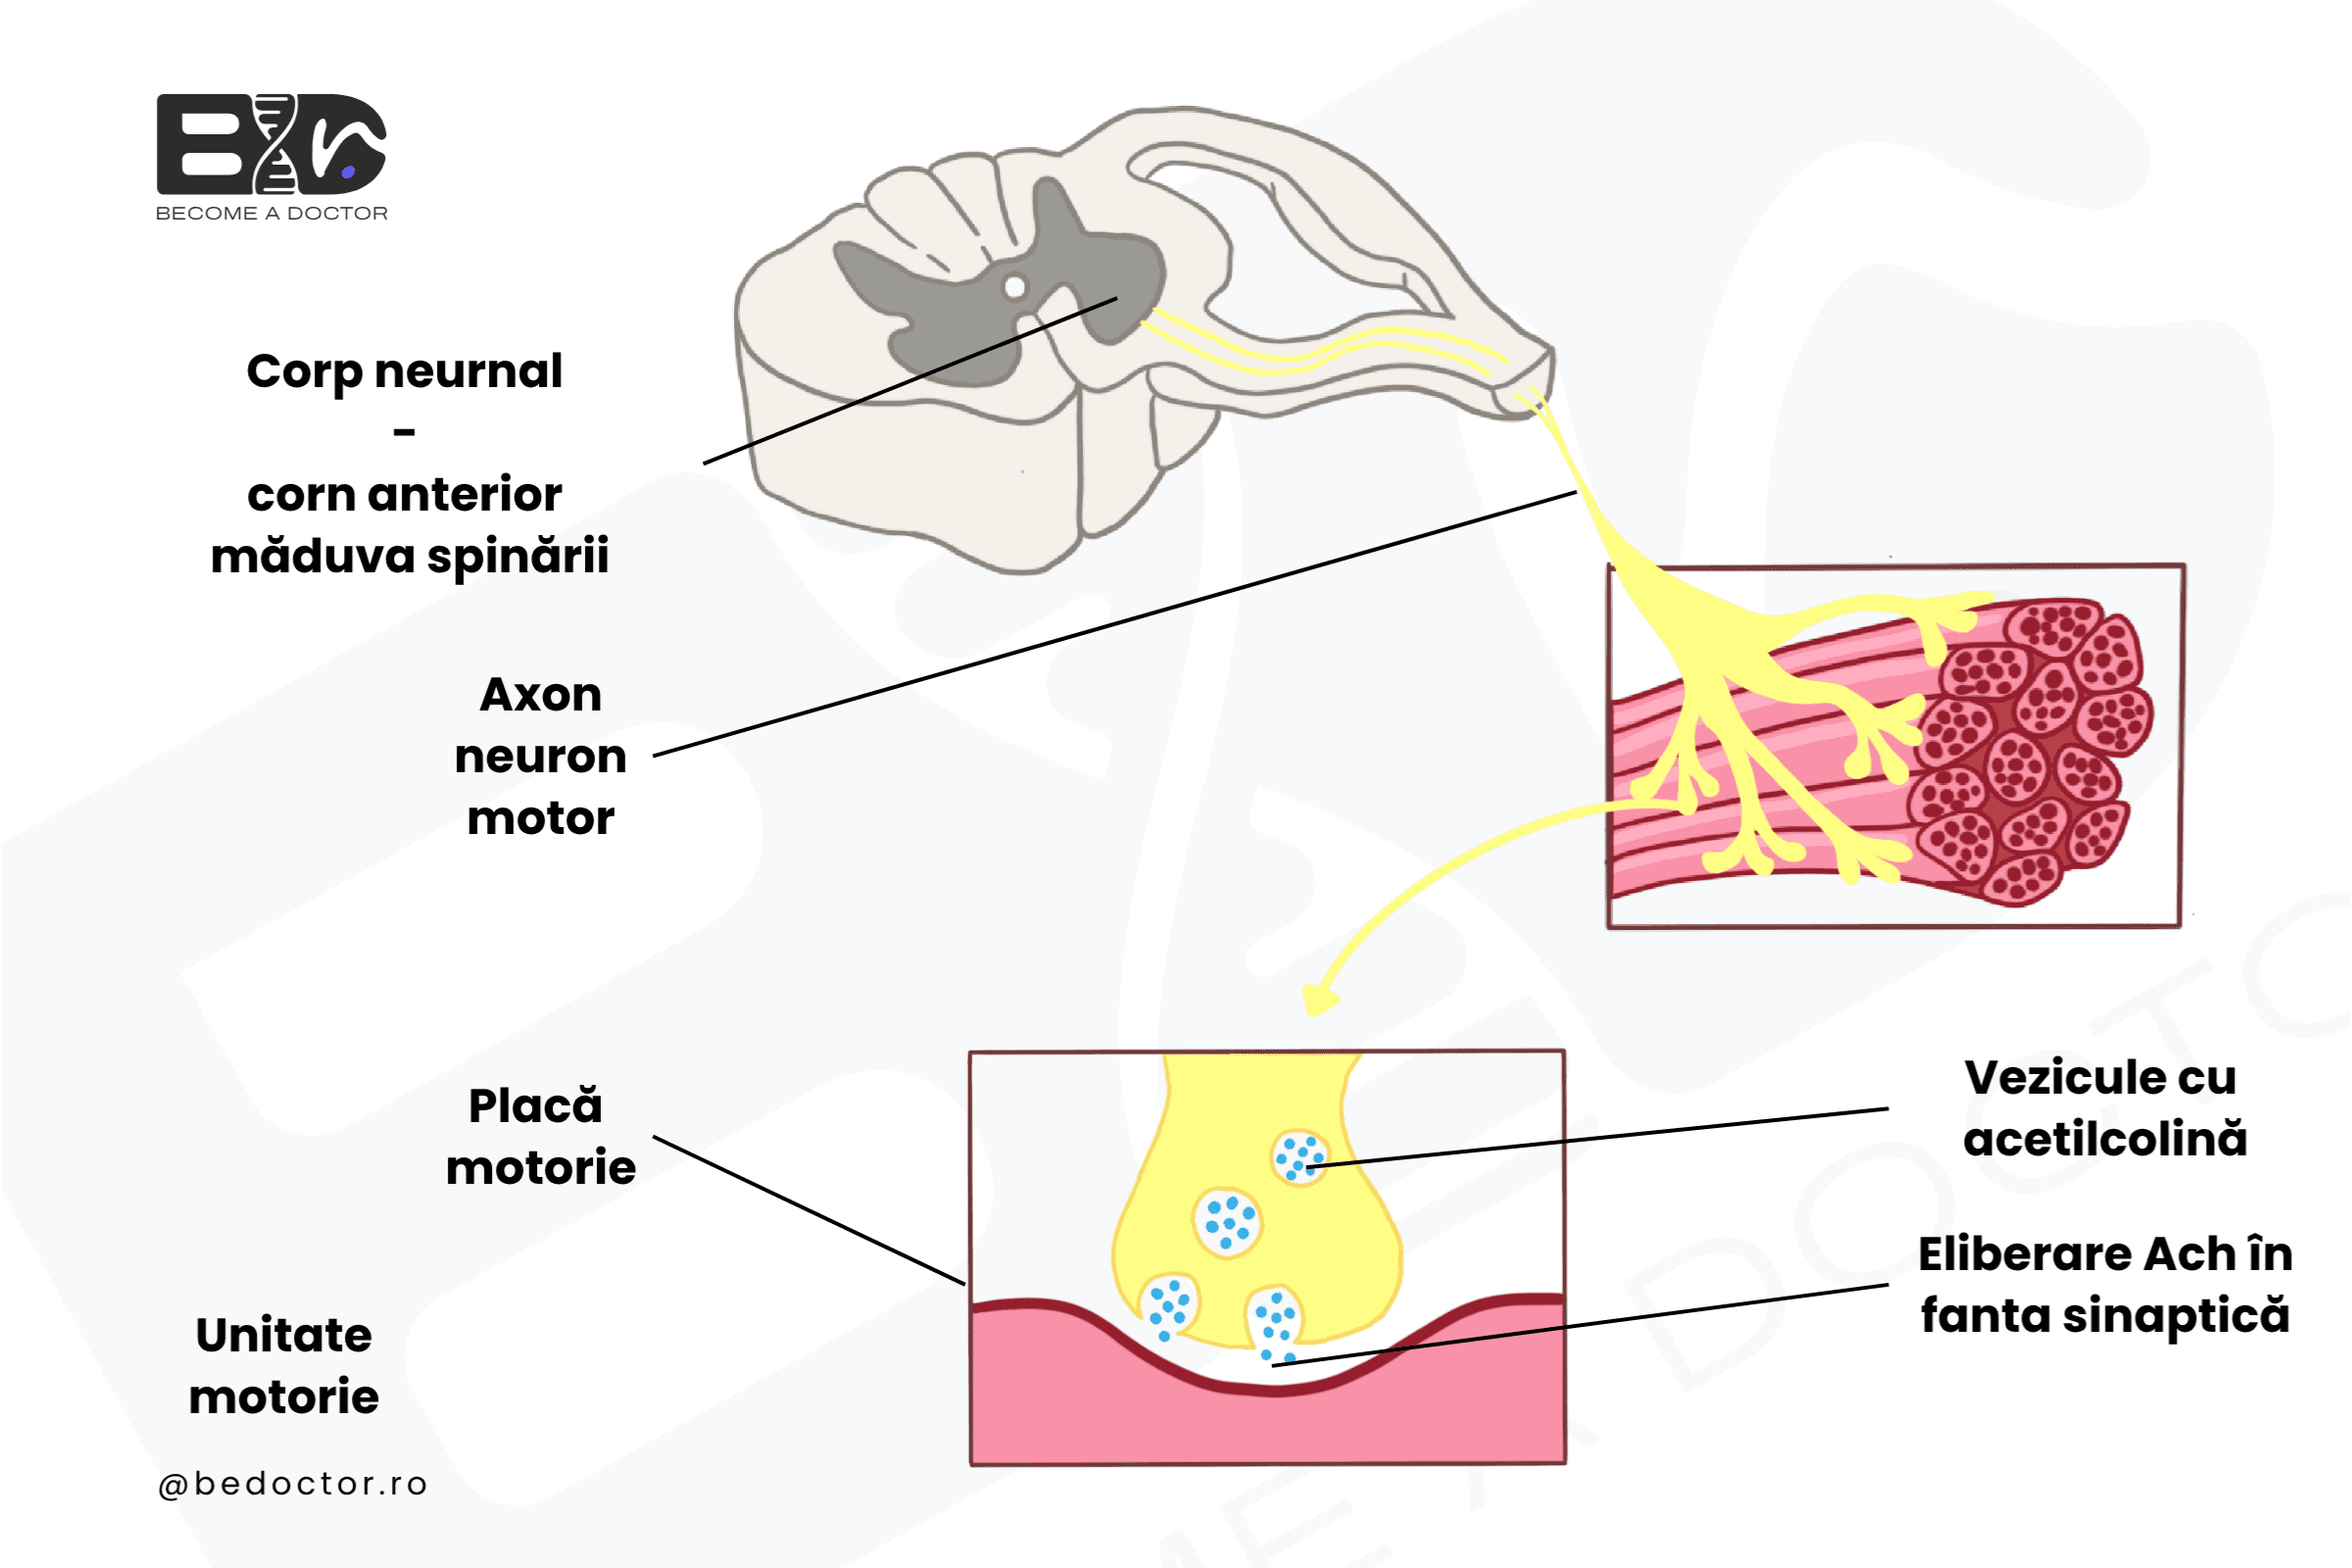
Figura nr. 8.4. Relația dintre sistemul nervos și sistemul muscular, cu două unități motorii.
CUM SE CITEȘTE FIGURA: Un mușchi conține mai multe unități motorii. Corpurile celulare ale neuronilor motori stau în substanța cenușie a măduvei spinării, iar din măduvă iese doar axonul.
Axonii mai multor unități motorii merg împreună într-un singur nerv și se despart abia în apropierea mușchiului.
Fiecare axon se împarte în mai multe ramuri terminale, iar fiecare ramură se termină pe altă fibră musculară; pe o fibră ajunge o singură terminație.
CAPCANĂ DE GRILĂ: „Tot sau nimic” se aplică fibrei, nu mușchiului. Mușchiul întreg răspunde gradual, prin numărul de fibre recrutate.
Contracția unei singure fibre musculare este numită secusă. Creșterea numărului de secuse, apărută într-un mușchi datorită unei stimulări continue, este numită sumație. Sumația reprezintă starea în care impulsurile nervoase ajung la un mușchi înainte ca precedenta contracție să fi încetat și rezultă parțial din incapacitatea reticulului sarcoplasmic de a recupera ionii de calciu înainte de o nouă stimulare. Intensitatea unei contracții prin sumație este întotdeauna mai mare decât a secuselor individuale, deoarece secusele sunt răspunsuri la stimulări mai rare.
Sumația poate culmina prin tetanus, o stare de contracție musculară maximală, susținută. De exemplu, strângerea pumnului plasează mușchii într-o stare de tetanus.
O altă caracteristică a mușchilor este capacitatea de a ajunge la starea de tonus muscular, în care mușchiul este menținut parțial contractat pentru o perioadă lungă de timp. Ea se caracterizează prin producerea unei stimulări consecutive, de scurtă durată, a fibrelor musculare, astfel încât anumite părți ale mușchiului sunt întotdeauna contractate, pe când cea mai mare parte a mușchiului rămâne relaxată. Ortostatismul, în prezența gravitației, se realizează cu ajutorul tonusului muscular, iar exercițiul fizic crește tonusul mușchilor utilizați.
Energia necesară contracției mușchilor striați scheletici
Energia utilizată pentru contracția musculară derivă din ATP. ATP-ul rezultă din reacțiile chimice care au loc în numeroasele mitocondrii aflate în vecinătatea filamentelor subțiri și groase. Capetele filamentelor de miozină conțin o enzimă, ATP-aza, care desface ATP-ul în ADP și grupări fosfat, eliberând energia din moleculă.
Rezervele de ATP din fibra musculară sunt limitate, deci ATP-ul trebuie regenerat în permanență din ADP și grupări fosfat. Una dintre sursele de regenerare a ATP-ului este fosfocreatina (creatin fosfatul). Fosfocreatina conține legături fosfat cu nivel energetic ridicat și reprezintă un depozit de energie celulară. Când ATP-ul este epuizat, fosfocreatina eliberează energie, prin transferarea fosfatului unei molecule de ADP, în vederea regenerării moleculelor de ATP.
Când un mușchi este extrem de activ, rezervele de ATP și de fosfocreatină se pot epuiza. Din acest moment, metabolismul glucidic devine sursă de energie pentru celula musculară. Metabolismul glucidic, prin respirație celulară, implică glicoliza, ciclul Krebs, sistemul transportor de electroni și chemiosmoza. Reacțiile respirației celulare care furnizează ATP au loc la nivelul citoplasmei și al mitocondriilor și necesită oxigen pentru finalizarea lor.
Oxigenul necesar respirației celulare este transportat la fibrele musculare prin intermediul hemoglobinei din eritrocite. În fibrele musculare, un pigment numit mioglobină leagă moleculele de oxigen și le depozitează temporar. Fibrele musculare roșii sunt roșii tocmai datorită prezenței mioglobinei, iar prezența ei în celulele musculare reduce necesitatea unui aport continuu de oxigen în timpul contracției.
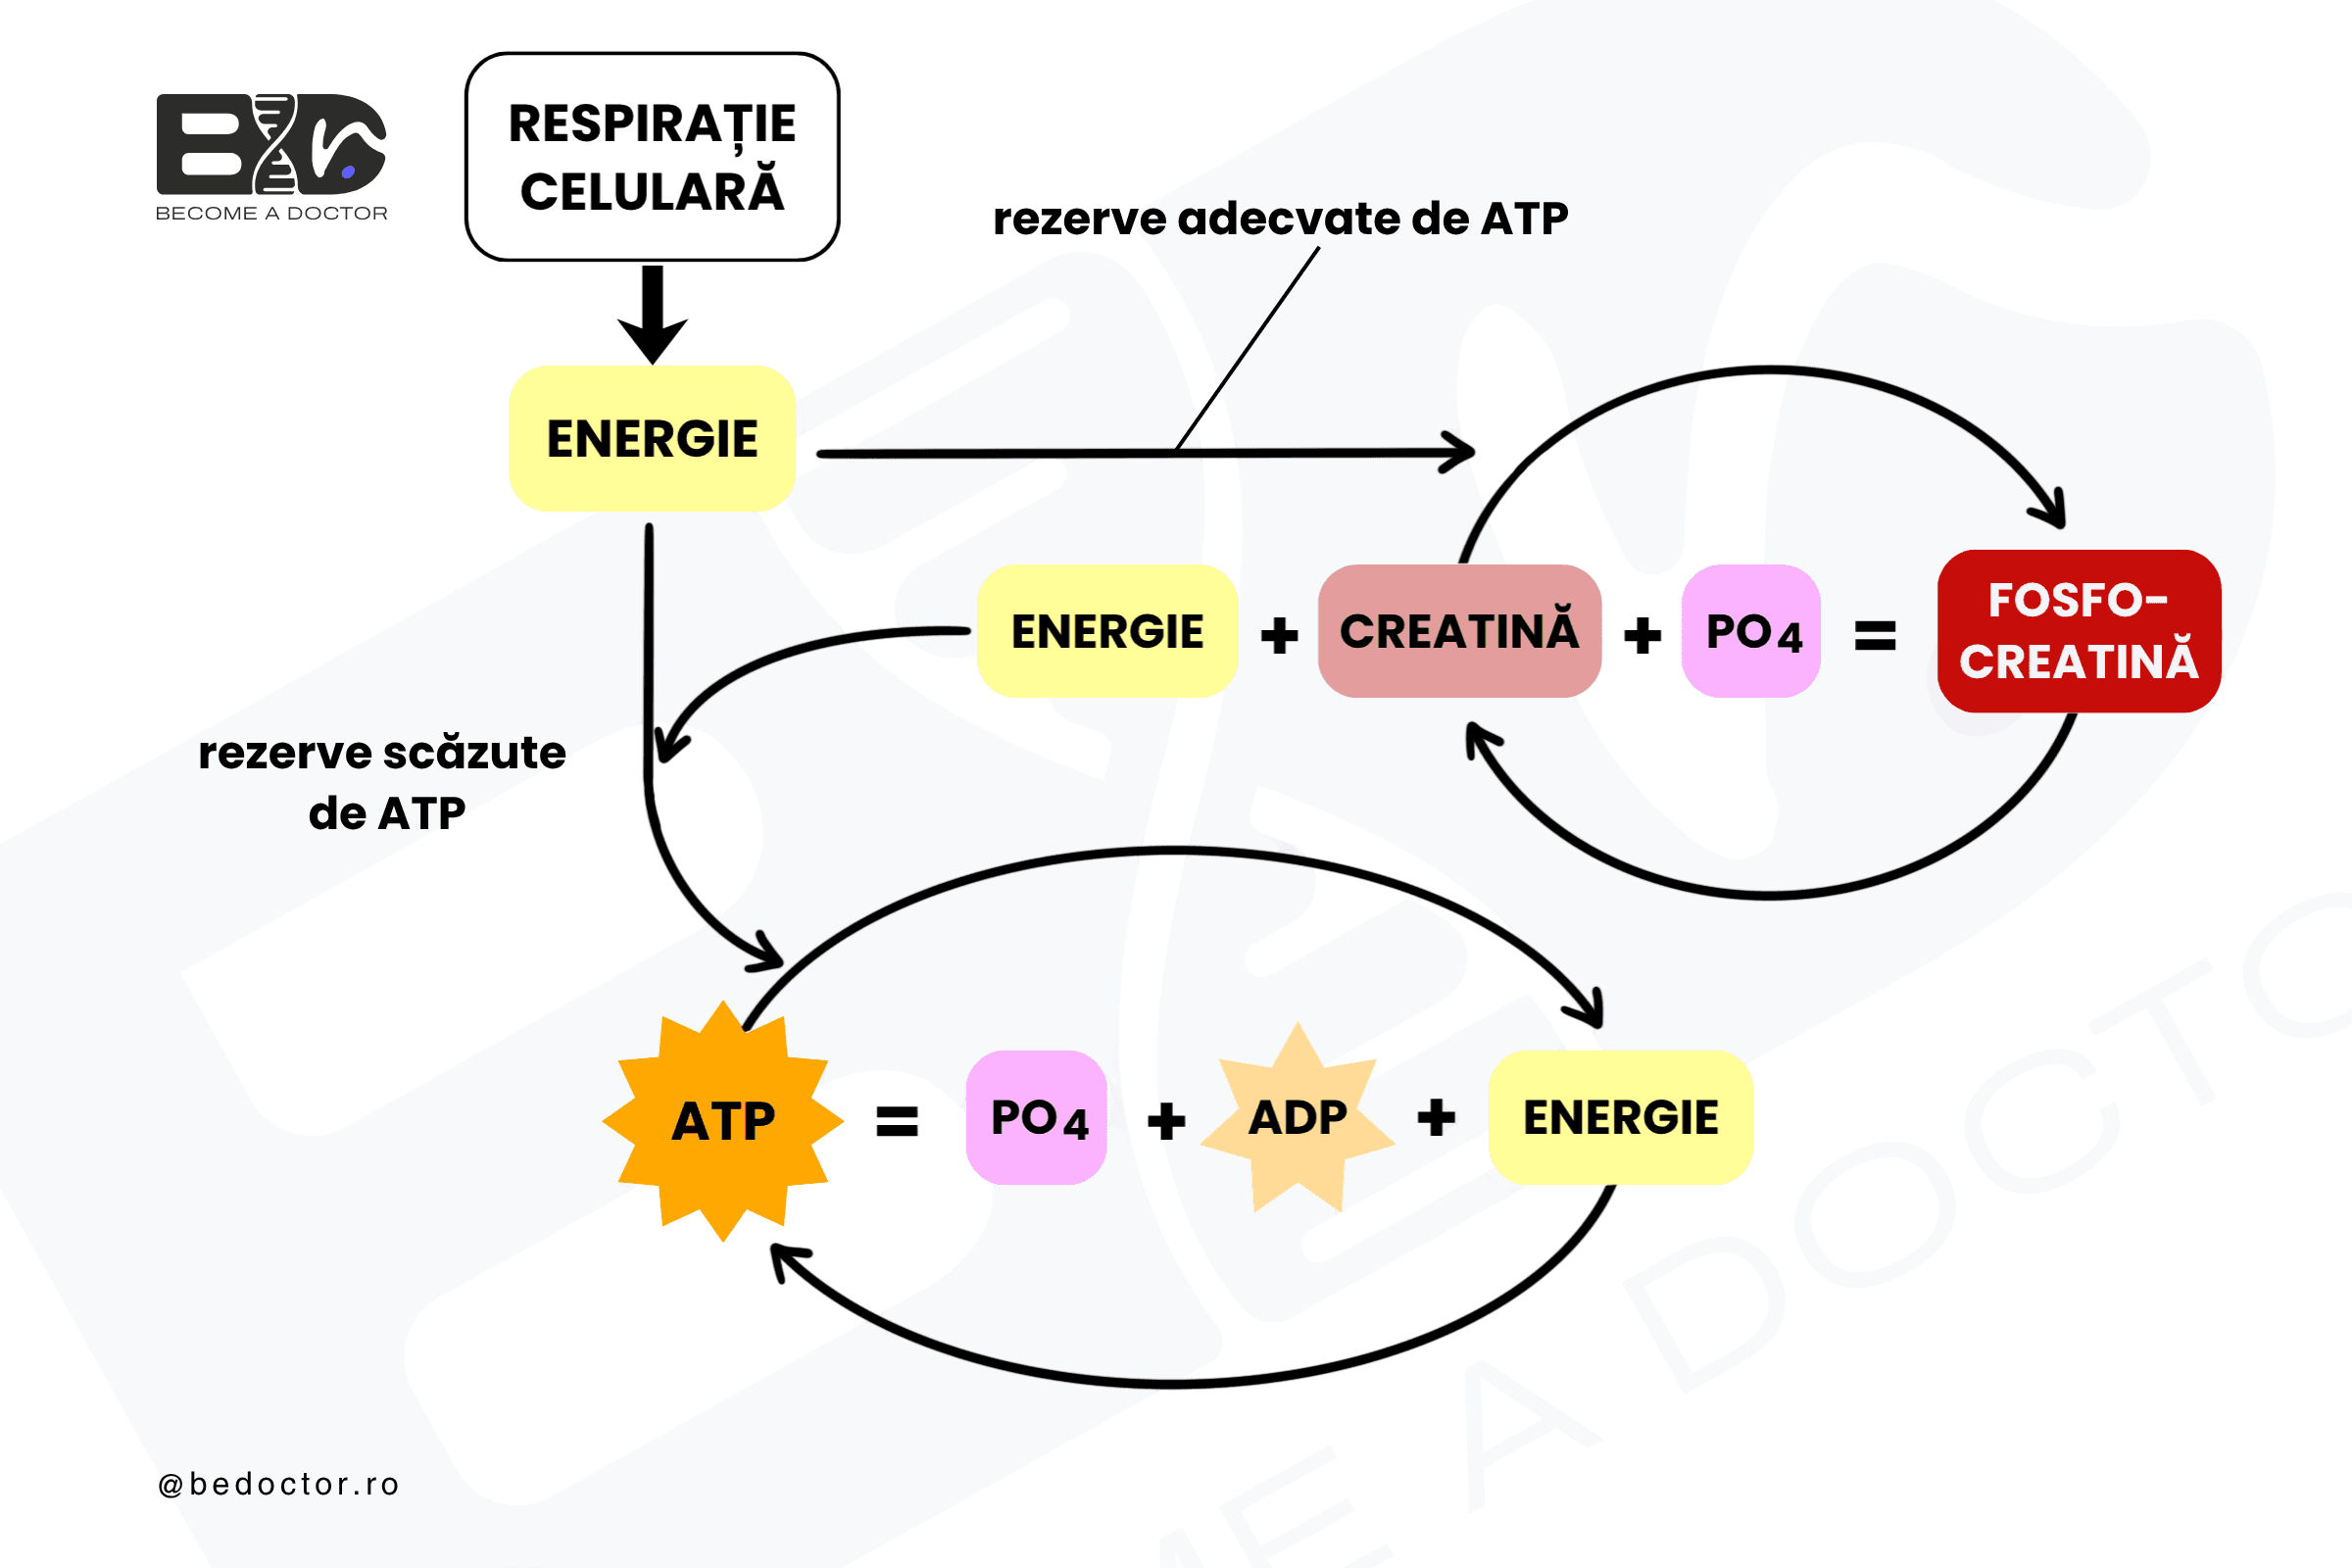
Figura nr. 8.5. Conversia energetică în celulele musculare.
CUM SE CITEȘTE FIGURA: Fosfocreatina se fabrică atunci când ATP-ul e suficient, nu în timpul efortului. Toată energia vine din respirația celulară și se împarte după starea rezervelor de ATP.
Când rezervele de ATP sunt adecvate, energia merge spre fosfocreatină; când sunt scăzute, direct spre ATP.
Formarea fosfocreatinei consumă energie, nu o eliberează: ENERGIE + CREATINĂ + PO₄ = FOSFOCREATINĂ.
Fosfocreatina nu se transformă în ATP: cedează energie pentru resinteza lui.
Fosfocreatina nu alimentează niciodată direct contracția: numai ATP-ul induce interacțiunea dintre actină și miozină.
Celula musculară ține energia în legături macroergice sub două forme: fosfocreatină și ATP.
Ambele reacții, sinteza fosfocreatinei și scindarea ATP-ului, sunt reversibile și se repetă ciclic.
ATP-ul are două legături macroergice, nu trei: numai două legături din moleculă poartă tilda „~”, amândouă între grupări fosfat; legătura dintre primul fosfat și riboză e una obișnuită.
Cele trei grupări fosfat sunt înșirate liniar, fiecare legată de următoarea printr-un atom de oxigen, iar lanțul se termină cu OH.
Fiecare fosfor are o legătură dublă spre un oxigen și o grupare OH, deci fosforii sunt identici între ei ca vecinătate.
Adenina e un ciclu dublu condensat, un inel de șase alături de unul de cinci, cu două vârfuri comune, iar gruparea amino stă pe inelul de șase.
Legătura bază-zahăr e N-C: se face printr-un atom de azot al inelului de cinci al adeninei, legat de primul carbon al ribozei.
Riboza e un inel de cinci format din patru atomi de carbon și un atom de oxigen, cu două grupări OH laterale, iar al cincilea carbon iese din inel și poartă lanțul de fosfați.
Când mușchiul se contractă intens pentru câteva minute, oxigenul nu poate fi asigurat suficient de rapid pentru satisfacerea necesităților celulare. În această situație, celulele musculare depind de ATP-ul rezultat din faza anaerobă a respirației celulare.
În timpul glicolizei anaerobe, moleculele de glucoză sunt convertite în acid piruvic prin etape succesive, acest proces furnizând câte două molecule de ATP pentru fiecare moleculă de glucoză scindată. Dacă rezerva de oxigen a celulei este epuizată, acidul piruvic este convertit în acid lactic.
Pe măsura acumulării acidului lactic se instalează oboseala musculară extremă și datoria de oxigen. Aceasta presupune suplimentarea nevoilor de oxigen pentru a preveni formarea de acid lactic. Acidul lactic determină modificări ale pH-ului, iar fibrele musculare vor răspunde astfel mai slab la stimulare.
O mare parte din acidul lactic produs în celulele musculare difuzează în afara celulei și este transportat de către sânge la ficat. Celulele ficatului utilizează oxigenul pentru a reconverti acidul lactic în molecule cu randament energetic ridicat. Oxigenul este de asemenea utilizat pentru resinteza ATP-ului prin respirație celulară și pentru formarea fosfocreatinei. Efectul datoriei de oxigen poate fi constatat prin dificultatea de a respira după un efort extenuant.
CAPCANĂ DE GRILĂ: Glicoliza anaerobă dă 2 ATP pe moleculă de glucoză, nu mai mult. Acidul lactic nu se degradează în mușchi: difuzează în sânge și e reconvertit în ficat, cu consum de oxigen: datoria de oxigen.
Funcțiile mușchilor netezi și cardiaci
Mușchiul neted
Țesutul muscular neted este format din celule (fibre) subțiri, alungite, fusiforme, fără striații și cu un singur nucleu, spre deosebire de fibrele mușchilor scheletici, care au mai mulți nuclei. Celulele musculare netede sunt așezate în straturi în peretele tubului gastrointestinal, în pereții anumitor vase de sânge sau ai unor canale (ducte). Celulele sunt unite între ele prin intermediul fibrelor de colagen și uneori prin joncțiuni de tip „gap”.
Citoplasma fibrei musculare netede prezintă multe filamente de actină ale căror capete sunt inserate pe suprafața internă a membranei plasmatice. Miozina este de asemenea prezentă în mușchiul neted, cu capete de miozină ca și în mușchiul scheletic. Fibra musculară netedă se contractă mult mai lent decât fibra scheletică, dar poate menține contracția o perioadă mult mai lungă.
Modelul de glisare a filamentelor se poate aplica și celulelor musculare netede, dar nu există reticul sarcoplasmic intracelular, iar rolul calciului pare să fie diferit. În mod caracteristic, musculatura netedă nu se află sub control voluntar, ceea ce îi permite reacții proprii, adaptate diverselor condiții, în mod inconștient.
CAPCANĂ DE GRILĂ: Absența reticulului sarcoplasmic e o trăsătură a netedului, nu a musculaturii involuntare în general: mușchiul cardiac, tot involuntar, are și tubi T, și reticul sarcoplasmic.
Anumite celule musculare netede sunt coordonate de sistemul nervos autonom (vegetativ): fibrele simpatice ale acestui sistem stimulează anumite contracții, în timp ce fibrele parasimpatice inhibă anumite contracții. De asemenea, celulele musculare netede sunt reactive la anumiți hormoni. Mușchii netezi se găsesc în viscere.
Fibra musculară netedă nu prezintă sarcomere, dar conține filamente de actină și de miozină, organizate în structuri asemănătoare miofibrilelor. Raportul dintre filamentele de miozină și de actină este de 1:16, în comparație cu raportul de 1:2 din fibra scheletică.
Mușchii netezi conțin, de asemenea, filamente intermediare, necontractile, atașate unor structuri numite corpi denși, distribuiți în întreaga celulă. Corpii denși permit cuplarea filamentelor de actină și sunt echivalenții liniei Z din mușchii scheletici. De acești corpi denși este atașat un citoschelet puternic, format din filamente intermediare. Fibrele musculare sunt înconjurate de țesut conjunctiv și sunt unite prin fibre de elastină și colagen. De obicei, fibrele musculare netede sunt organizate în straturi musculare, ca de exemplu cele din pereții vaselor de sânge. Contracțiile mușchilor netezi din vezica urinară, rect și uter permit acestor organe să își elimine conținutul.
În mușchii netezi nu există joncțiuni neuromusculare bine structurate, dar butonii terminali ai axonilor eliberează neurotransmițători în joncțiunile difuze de la nivelul fibrelor musculare netede.
Mușchii netezi nu au troponină care să se cupleze cu tropomiozina și care astfel să acopere locurile de cuplare ale actinei cu capetele miozinei, aceștia fiind pregătiți oricând pentru contracție. Când o fibră musculară netedă este activată, calmodulina, și nu troponina, este cea care leagă calciul. Fosforilarea capetelor miozinei se realizează printr-o serie de reacții, permițând legarea actinei și declanșarea contracției.
CAPCANĂ DE GRILĂ: În mușchiul neted, calciul se leagă de calmodulină, nu de troponină, care lipsește cu totul.
Echivalentul liniei Z sunt corpii denși, nu discurile intercalare, care sunt ale cardiacului.
Raportul miozină:actină e 1:16 la neted și 1:2 la scheletic, deci netedul are mult mai multă actină pe filament gros.
Mușchiul neted poate fi clasificat în mușchi unitar și mușchi multiunitar. Fibrele mușchiului neted unitar se contractă ritmic, ca o unitate, fiind unite prin joncțiuni de tip „gap”. Prin comparație, în mușchiul multiunitar, ca de exemplu cel din căile respiratorii, arterele mari sau mușchii erectori ai firelor de păr, fibrele acționează independent una față de cealaltă, joncțiunile de tip „gap” fiind rare. Mușchiul neted multiunitar are terminații nervoase bogate, iar unitatea motorie se formează cu un anumit număr de fibre musculare. Componenta vegetativă a sistemului nervos este cea care trimite impulsuri către mușchii netezi.
Mușchiul cardiac
Mușchiul cardiac se găsește numai în structura inimii. Celulele musculare cardiace prezintă un singur nucleu, au aspect striat și numeroase mitocondrii. Fibrele musculare cardiace sunt adesea ramificate, formând o adevărată rețea cu celulele (fibrele) învecinate. Prezintă sistem tubular T și reticul sarcoplasmic.
Capetele celulelor cardiace sunt strâns legate unul de celălalt prin intermediul discurilor intercalare. Acestea sunt regiuni ale membranei celulare care prezintă numeroase joncțiuni de tip „gap”, prin intermediul cărora impulsul electric ce determină contracția se propagă cu ușurință de la o celulă la alta. Discul intercalar este prezent numai în celulele cardiace și nu se găsește în alte tipuri de țesuturi musculare.
Mușchiul cardiac nu se află sub control voluntar. Acesta primește impulsuri prin ramuri ale sistemului nervos vegetativ, care pot modifica contracțiile.
CAPCANĂ DE GRILĂ: Contracțiile celulelor cardiace nu sunt inițiate de sistemul nervos vegetativ, ci de țesutul excitoconductor propriu al inimii; vegetativul modifică ritmul, nu îl produce.
Caracteristică | Mușchiul cardiac | Mușchiul scheletic |
|---|---|---|
Tip de control | Sistem nervos vegetativ | Sistem nervos somatic |
Dispunerea fibrelor | Ramificate | Neramificate |
Aspect microscopic | Striat | Striat |
Număr de nuclei pe fibră | Unul | Mulți |
Discuri intercalare | Prezente | Absente |
Aranjamentul tubilor | Un tub pe sarcomer, aflat la nivelul liniei Z | Doi tubi pe sarcomer, localizați la nivelul joncțiunilor A-I |
Durata potențialului de acțiune | 150-300 msec | 1-2 msec |
Timpul de contracție | 150-300 msec | Aproximativ 40 msec, cu variații la mușchi diferiți |
Perioada refractară absolută | 150-300 msec | 1-2 msec |
Tabelul nr. 8.3. Comparație între mușchiul cardiac și cel scheletic.
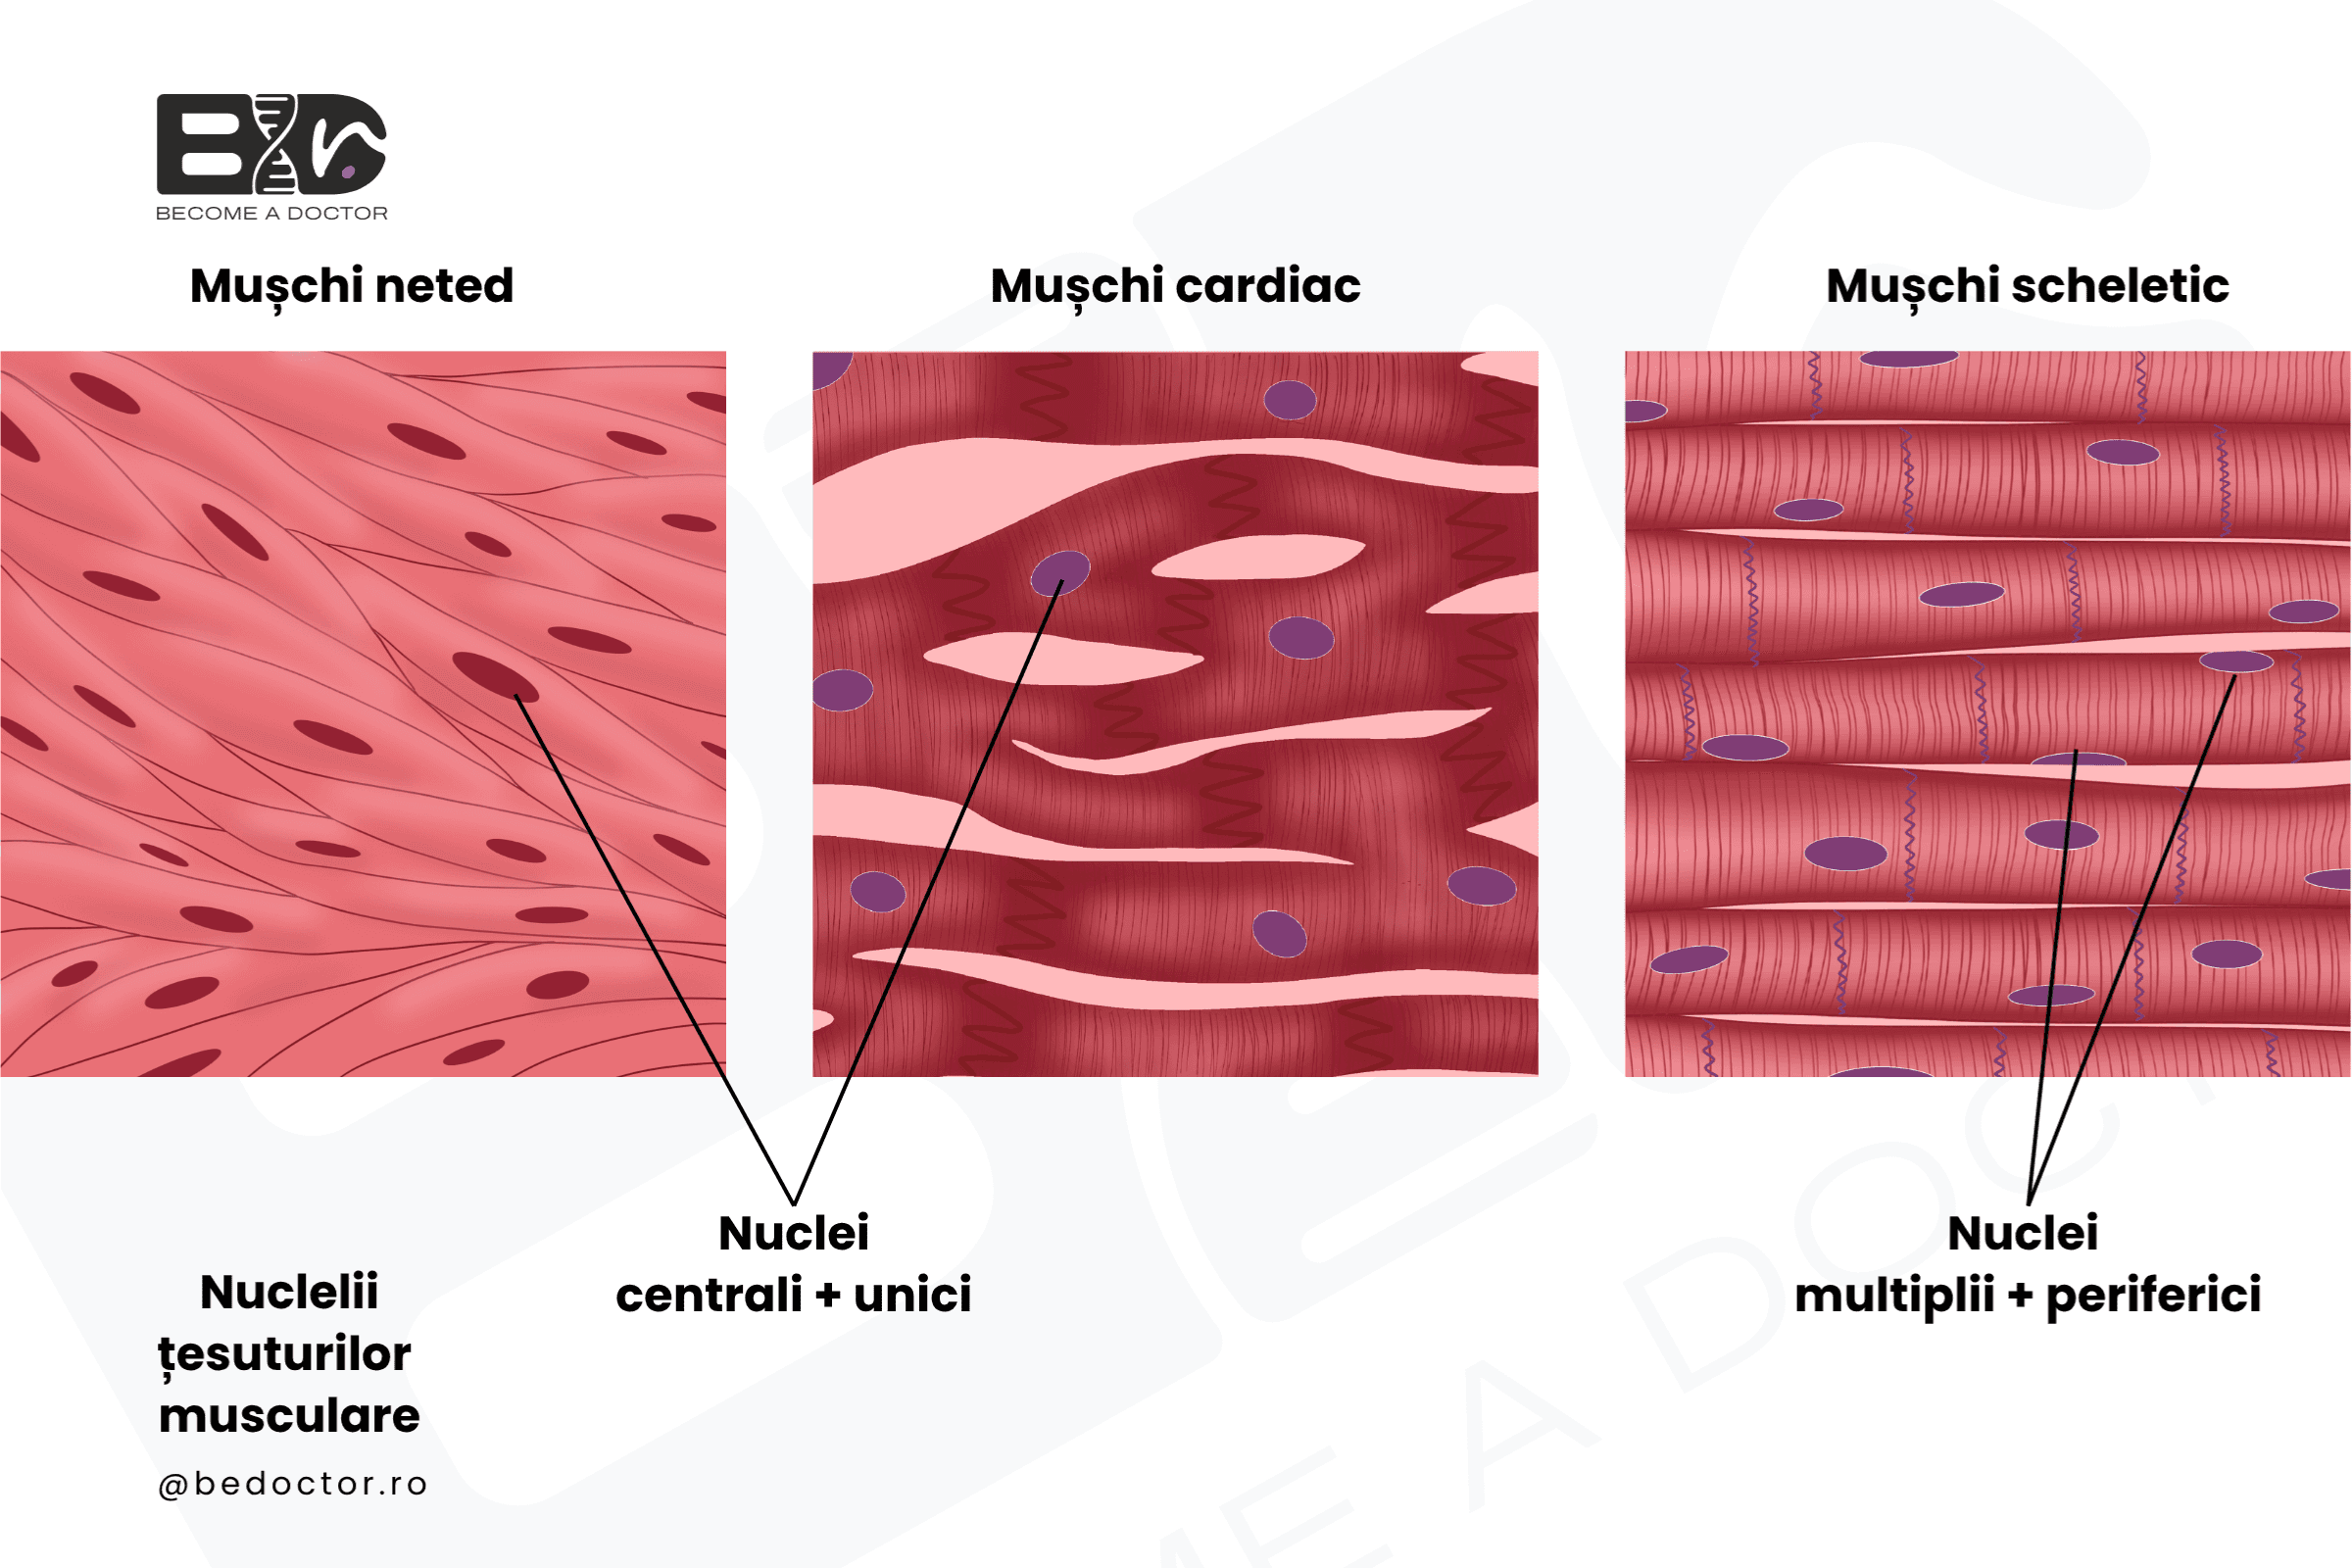
Figura 8.3 Comparație microscopică a celor trei tipuri de fibre musculare.
CUM SE CITEȘTE FIGURA: Cele trei tipuri de mușchi se deosebesc prin așezarea fibrelor: scheletice paralele, netede încrucișate, cardiace ramificate într-o rețea, cu discuri intercalare. De la stânga la dreapta: striat scheletic, neted, cardiac.
Fibrele scheletice sunt paralele între ele și de grosime constantă pe toată lungimea, cu mai mulți nuclei înșirați de-a lungul aceleiași fibre.
Celulele musculare netede sunt încrucișate, la unghiuri diferite una față de alta, nu paralele, și se subțiază la ambele capete; nucleul stă în porțiunea cea mai groasă a celulei.
Fibrele cardiace se ramifică și se reunesc cu vecinele, închizând ochiuri: e o rețea, nu doar fibre ramificate care se termină liber.
Discurile intercalare taie fibra cardiacă pe toată lățimea, la intervale mult mai mari decât striațiile, și sunt mai groase și mai închise decât ele.
Doar mușchiul neted e complet lipsit de striații; fibra cardiacă are aceleași striații ca cea scheletică.